Intramuskulär boosting med HIFN-Alpha 2b Förbättrar BCGphipps-inducerat skydd i en murin modell av spetälska
Apr 28, 2023
Abstrakt:
Värdens immunitet mot Mycobacterium leprae omfattar ett spektrum av mekanismer som sträcker sig från cellulärt immunitetsdrivet skydd till skador associerade med humoral immunitet som i typ-2 spetälska reaktioner. Även om typ I-interferoner (IFN) deltar i att eliminera intracellulära patogener, är deras bidrag till produktionen av antikroppar och CD3 plus FOXP3 plus regulatoriska T-celler (Tregs) i BCG-vaccinmedierat skydd vid spetälska okänt. BCGphipps (BCGph) priming följt av intramuskulär hIFN- 2b ökar signifikant minskad lesionsstorlek och Mycobacterium lepraemurium tillväxt i huden. T-follikulära regulatoriska celler (TFR), en undergrupp av Tregs inducerade av immunisering eller infektion, finns i germinal centra (GCs) och modulerar antikroppsproduktion.
Vi fann försämrad Treg-induktion och förbättrade GCs i dränerande lymfkörtlar hos BCGph-primade och hIFN- 2b-boostrade möss. Dessutom framkallade dessa möss betydande mängder IL-4 och IL-10 i serum. Sålunda stödjer våra resultat adjuvansegenskaperna hos hIFN- 2b i samband med BCGph-priming för att förbättra den skyddande immuniteten mot hudspetälska.
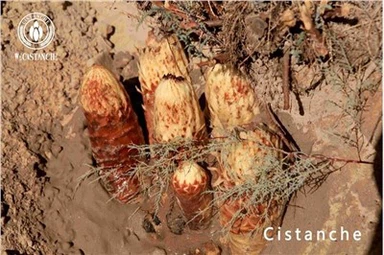
Skyddsimmunitet hänvisar till kroppens förmåga att försvara sig mot infektiösa patogener genom att producera antikroppar, T-celler etc., och är en av de viktiga mekanismerna för kroppen att stå emot sjukdomar. Immunitet avser kroppens förmåga att känna igen och svara på olika främmande ämnen (inklusive patogener, främmande kroppar, tumörceller etc.), inklusive cellulär immunitet och humoral immunitet. Skyddsimmunitet är en del av immunitet, och de två är nära besläktade. God immunitet kan främja förbättringen av skyddande immunitet, för att bättre förhindra uppkomsten av sjukdomar. Samtidigt kan förbättringen av den skyddande immuniteten också förbättra immuniteten, vilket gör att kroppen bättre kan hantera olika yttre utmaningar. Därför är det mycket viktigt att upprätthålla ett sunt immunsystem, inklusive god skyddande immunitet, för att upprätthålla god hälsa. Ur denna synvinkel är immunitet också mycket viktigt. Om vi vill förbättra vår immunitet kan Cistanche förbättra vår mänskliga immunitet avsevärt. Polysackariderna i Cistanche kan reglera immunsvaret hos det mänskliga immunsystemet och förbättra immuncellerna. Stressförmåga, förstärker den bakteriedödande effekten av immunceller.

Klicka på hälsofördelarna med cistanche
Nyckelord:
Mycobacterium lepraemurium; murin spetälska; interferon alfa; BCGphipps; könscentrum; regulatoriska T-celler.
1. Introduktion
Mycobacterium leprae och Mycobacterium lepromatosis, de etiologiska medlen för mänsklig spetälska [1,2], påverkar huden och perifera nerver [3]. Även om multidrogbehandlingar (MDT) för spetälska finns tillgängliga, är antalet nya fall stabilt (700,000 per år).
Dessutom gör avsaknaden av ett effektivt diagnostiskt förfarande det svårt att spåra M. leprae-överföring [4–7]. Den genetiska predispositionen för tidig spetälska [8] understryker behovet av en lämplig diagnos och utveckling av billiga immunterapier för att minska förekomsten av spetälska i utvecklade länder [9,10]. Spektrum av kliniska manifestationer vid spetälska korrelerar med den typ av immunsvar som framkallas. Till exempel begränsar tuberkuloid spetälska (TT), kännetecknad av ett dominant Th1-svar, bacillertillväxt via IFN-driven aktivering av mikrobicida funktioner hos makrofager. Däremot har produktionen av klassiska Th2-cytokiner (IL-4 och IL-10) associerats med förlust av skydd och ökad bacillär tillväxt vid spridd lepromatös spetälska (LL) [10]. Det finns också mellanliggande subtyper som representerar en blandning av Th1- och Th2-svar [10].
Infektion av möss med M. lepraemurium (MLM) [11,12] har använts för att studera immunologiska mekanismer för mänsklig spetälska [11-13], även om MLM inte visar tropism för perifera nerver [11,13] som M. leprae gör [14]. Icke desto mindre är båda mykobakterierna icke-odlingsbara och växer långsamt i värden, vilket fördubblar sitt antal på 1–3 veckor.
Experimentell subkutan infektion med små doser av bakterier efterliknar den naturliga sjukdomen som vanligtvis uppstår när störningar av barriärer underlättar mykobakteriell kolonisering, vilket utlöser en immunreaktion på perifer nivå [13,15–17]. Medan cellmedierad immunitet (CMI) är nedsatt, är humoral immunitet praktiskt taget opåverkad vid spetälska hos människor och murin [18]. Dessutom formar Th1-- eller Th2--celler, andra T-lymfocyter, värdens immunitet mot M. leprae-infektion [18,19].
Det är spännande hur M. leprae påverkar värdimmuniteten i de olika subtyperna av mykobakteriell sjukdom. En hypotes är att patogenen nedreglerar värdens humorala och cellulära immunitet för att infektera huden och perifera nerver [3,14,15]. Det finns också bevis för att bacillen försämrar makrofagaktiveringen. Det minskar också uttrycket av TNF-alfa och molekyler som prostaglandiner som inducerar produktionen av IL-1 och reaktiva syre- och kväveintermediärer (ROI och RNI), avgörande för makrofagernas mykobaktericida funktioner [20–22].
Humorala svar som genereras i GCs av sekundära och tertiära lymfoida vävnader deltar i den skyddande immuniteten mot patogener [23-26]. En färsk rapport om spetälska belyste Tregs kritiska roll i hämningen av Th1- och Th17-cellsvar [19]. Ja, balansen mellan dessa undergrupper av T-celler vid GCs [27–29] dikterar de skyddande eller patologiska resultaten av infektionssjukdomar och autoimmuna sjukdomar [30,31] och är avgörande för utvecklingen av terapier för att inducera skyddande immunitet [26,27 ].
I synnerhet modulerar T-hjälparfollikulära celler (TFH) och särskilt T-follikulära regulatoriska celler (TFR) GC-svaret för att inducera långvariga humorala immunsvar samtidigt som de förhindrar produktionen av autoantikroppar [32,33]. Med tanke på att typ I IFN är associerad med genereringen av både TFH och Tregs, framstår det som ett lovande adjuvans för att stimulera TFH-svar i GCs i samband med BCG-vaccination [34].
Slemhinneadministrering av typ I IFN inducerar mognad av dendritiska celler och generering av CXCR5 plus CD4 plus TFH, vilket underlättar GC-utveckling och produktion av antikroppar med hög affinitet i lymfkörtlar [34]. Däremot upphäver typ I IFN värdimmunitet i human tuberkulos genom att hämma produktionen av inducerbart kväveoxidsyntas (iNOS), IL-12p40, IL-1A och IL-1 samtidigt som de inducerar IL-10- och IL-1R-antagonister [35–38]. Således är deltagandet av typ I IFNs kontextberoende [38-42]. Typ I IFN produceras på en jämn nivå, men när en intracellulär patogen invaderar värden, induceras flera heterogena och komplexa antivirala eller antibakteriella medfödda svar [43-48], inklusive antikroppsklassbyte, somatisk hypermutation och förbättring av antigentillgänglighet i GC som kommer att leda till starka och effektiva antikroppssvar [34,49].
Vi har tidigare rapporterat skyddet som ges av successiv intramuskulär IFN-förstärkning hos möss vaccinerade med Mycobacterium bovis BCG och utmanade med MLM [42] eller mot aerosoliserad M. tuberculosis utmaning [41]. Hos möss som utmanats med MLM korrelerade skyddet med ökad produktion av iNOS, kväveoxid och IgG3-antikroppar [42]. I samband med M. tuberculosis-utmaningen framkallade de skyddade mössen ett Th1-svar [41].
I en nyare studie modulerade typ I IFN autofagi och metabolism vid spetälska [50]. Vi beslutade i denna studie att ytterligare undersöka skyddet mot murin spetälska inducerad genom vaccination med M. bovis BCGphipps (BCGph) och en farmaceutisk presentation av humant IFN- 2b [51]. I nyare studier användes en rekombinant BCG som uttrycker humant IFN- 2b för att framgångsrikt behandla blåscancer [51–55]. I överensstämmelse med dessa data var vårt mål i denna studie att analysera skyddet som induceras av BCGph-priming och hIFN- 2b-boosting i en murin modell av spetälska. Sammantaget förutser våra resultat potentialen av subkutan priming av BCGph och intramuskulär hIFN- 2b-boosting för att inducera skyddande immunitet mot mänsklig spetälska.

2. Material och metoder
2.1. Djur
Specifika patogenfria Balb/c-möss föddes upp och hölls i djuranläggningarna i Escuela Nacional de Ciencias Biológicas, Instituto Politécnico Nacional i Mexico City.
Alla djurförsök utfördes efter godkännande (7 mars 2014) av Institutional Animal Care and Management Committee (CIE-ENCB ZOO 016/2014).
2.2. Mikroorganismer
BCG Phipps-stammen (ATCC® 35744™) (BCGph) är en variant av BCG-stammen som har förlorat regionen RD1 som kodar för ESAT-6 och CFP10, med det lägsta antalet T-cellsepitoper , 316, kontra BCG Tokyo, 359, och BCG Pasteur, 331, (Zhang et al., 2013) [51] och tillhandahölls av Dr Hernández-Pando (INCMNSZ, Mexico City, MX). Vaccinsuspensioner förvarades sedan vid –80 ◦C fram till användning. Mycobacterium lepraemurium (MLM) icke-odlingsbar stam isolerades från mjälten på möss som bar en fyra månader lång infektion via en procedur som beskrivs av Prabhakaran et al., 1976 [56], följt av rening med användning av den personliga isoleringsproceduren som beskrivs av Draper P. 1980 [57]. Kortfattat suspenderades 4 g mjältvävnad i 20 ml 0,2 M sackaros och maldes i en homogenisator av glas Potter-Elvehjem-typ. Den resulterande suspensionen centrifugerades under 20 minuter vid 150 x g för att avlägsna cellrester (Sorvall RV5B, rötor HB4) (Sorvall Instruments, Wilmington, DE, USA). Sedan lades 9 mL av supernatanten över 12 mL 0,3 M sackaros, och rören centrifugerades vid 3500 × g i 10 minuter vid 4–10 ◦C (Sorvall RC5B). Den resulterande bacillerika pelleten återsuspenderades i 20 ml 0,2 M sackaros, och 9 ml alikvoter lades på 12 ml 1,5 M KCl.
Därefter centrifugerades röret vid 4 ◦C under 10 min vid 3500× g. Bacillerna uppsamlades, tvättades tre gånger med fosfatbuffrad koksaltlösning (PBS) (0,01 M Na/K-fosfat, 0,15 M NaCl, pH 7,4) och återsuspenderades i 40 ml av en lösning innehållande en blandning av Percoll (3 delar) och 0,1 procent Tween 80 (7 delar). Suspensionen centrifugerades vid 23,000× g. Den bacillära pelleten uppsamlades och tvättades fem gånger med PBS tills den eliminerade Percoll. Renheten hos det bacillära preparatet bekräftades av Ziehl-Neelsen-färgning. Den renade bacillärsuspensionen framställdes i syntetiskt 7H9 Middlebrook-buljong OADC-medium (DIFCO, Detroit, MI, USA) (7H9-OADC-medium) och kvantifierades via en nefelometrisk referenskurva framställd med kända mängder bakterier. Bacilärsuspensionen delades upp i alikvoter och frystes vid -20 ◦C tills den var klar för användning.
2.3. Immuniseringar
Grupper av åtta veckor gamla Balb/c-möss (n=6) immuniserades subkutant med 8 × 10³ kolonibildande enheter (CFU) av BCGphipps i 200 µL steril PBS. En månad senare förstärktes varje grupp av möss intramuskulärt under tre på varandra följande dagar (30, 31 och 32 dagar efter vaccination) med 100 µL PBS eller med 100, 200 eller 300 internationella enheter (IE) hIFN{{14} }b (Urifron, Probiomed, Azcapotzalco, Mexico City, Mexiko).
2.4. M. lepraemurium Utmaning
För utmaningsexperimenten inokulerades möss intradermalt med 2 × 10⁶ livsduglig MLM i 20 µL PBS. Därefter inhystes mössen i standardförhållanden och försågs med renat vatten och Purina-gnagarchowchips (Cuautitlan Izcalli, Mexiko) ad libitum. De infekterade mössen övervakades under åtta veckor, de tidpunkter då lesioner var uppenbara i huden på infekterade djur. Sjukdomsprogression var variabel hos mössen och korrelerade med experimentella terapier (PBS, BCGph eller hIFN- 2b).
2.5. Enzym-Linked Immunosorbent Assays (ELISA)
Antikroppar i sera från MLM-infekterade möss mättes med indirekta enzymkopplade immunosorbentanalyser (ELISA). Kortfattat belades 96-brunnsplattor (Nunc, Rochester, NY, USA) över natten vid 4 ◦C, med 1,0 µg peptidoglykolipider lösta i etanol [38]. Efter etanolindunstning vid rumstemperatur [37] blockerades icke-specifik bindning med 3 procent fettfri mjölk i PBS från 2 till 3 timmar. Efter att ha kastat den blockerande lösningen tillsattes 0,1 ml av serumet utspätt (1:100) i 1 procent fettfri mjölk i PBS till brunnarna och inkuberades över natten vid 4 ◦C.
Sedan tvättades plattorna noggrant med PBS, och bundna antikroppar detekterades med {{0}}.1 mL anti-mus IgG (1:4000, BD 550487, BD Pharmingen, San Diego, CA, USA), IgG1-HRP (1:2500, ab 97240, Abcam, Cambridge, MA, USA), IgG2a-HRP (1:2500, ab97245, Abcam), IgG2b-HRP (1: 2500, ab97250, Abcam), eller IgG3-HRP (1:2500, ab97260, Abcam), eller biotinkonjugerad råtta anti-mus IgA monoklonal antikropp (1:1000, BD 550487, BD Pharmingen), följt av pepparrotsperoxidas (HRP)-konjugerad råtta-anti-mus Ig-antikropp (1:1000, BD 550487, BD Pharmingen) eller avidin-HRP (ab 59653, abcam) Det kromogena substratet, tetrametyl-bensidin i 0,05 M citrat-fosfatbuffert 5.2), kompletterat med 0,01 procent väteperoxid (H2O2), sattes till brunnarna för färgutveckling. Reaktionen stoppades med 1 M H3P04. De optiska tätheterna mättes vid 450 nm i en ELISA-läsare för mikroplattor (LabSystems Multiskan Plus, LabX, Midland, ON, Kanada). IFN-, IL-4, IL-17, IL-6, TNF- och IL-10 mättes i serumet med specifika sandwich-ELISA-kit (PEPROTEC Inc., Cranbury , NJ, USA). enligt tillverkarens instruktioner.

2.6. Mätningar av NO i sera från möss
I korthet behandlades sera med etanol (1:1) för att fälla ut proteiner och andra störande faktorer. Efter centrifugering vid 3000 rpm under 20 minuter, placerades 20 µL av det återvunna serumet i brunnar på en ELISA-platta tillsammans med 100 µL av Griess-reagenset och 80 µL destillerat vatten. Griess-reagenset är en volym-till-volym-blandning av lösning A (2 procent sulfanilamid i 5 procent fosforsyra) och lösning B (0,1 procent N-(1-naftyl) etylendiamin, dihydroklorid. Efter en 30 minuters inkubation vid 25◦ C registrerades den utvecklade rosa färgen i en ELISA-läsare vid 595 nm. Värdena extrapolerades till en standardkurva för natriumnitrit i intervallet 1–100 µM.
2.7. Immunfluorescens
Primära antikroppar erhölls från följande företag: get-anti-iNOS (klon M-19, Santa Cruz Biotechnology, Dallas, TX, USA), kanin-anti-nitrotyrosin (AB 5411, EMD, Millipore, Burlington, MA, USA ), biotinråtta Ly6C/Ly6G (klon RB6-8C5, BD Pharmingen), get-anti-CD3-epsilon (Clone M-20, Santa Cruz Biotechnology), råtta-antimus FoxP3 (klon FJK{{12} }s, eBioscience, San Diego, CA, USA), anti-prolifererande cellkärnantigen från get (klon C-20, Santa Cruz Biotechnology), FITC-jordnötsagglutinin (L7381- 1MG, SIGMA, St. Louis, MO, USA) och APC-råtta anti-mus CD45R (klon RA3-6B2, BD Pharmingen).
Primära antikroppar avslöjades med följande sekundära antikroppar: Alexa Fluor 568 åsna anti-get IgG (A11057, Thermo Fisher Scientific, Waltham, MA, USA), Alexa Fluor 488 åsna anti-kanin IgG (711-546, Jackson ImmunoResearch Laboratories , West Grove, PA, USA), och Alexa Fluor 680 streptavidin (S32358, Thermo Fisher Scientific).
Fem µm formalinfixerade paraffiniserade sektioner inkuberades vid 6 0 ◦C över natten för avparaffinering. Vävnadssektioner överfördes snabbt till xylener (247642-2.5L, SIGMA) och hydratiserades genom att sekventiellt nedsänka objektglasen i absolut alkohol, 96 procent alkohol, 70 procent alkohol och vatten. Objektglasen nedsänktes i en antigenåtervinningslösning, kokades i 30 minuter och kyldes ner i 10 minuter vid rumstemperatur (RT). Objektglasen sköljdes flera gånger i vatten och överfördes till PBS. Icke-specifik bindning blockerades med 5 procent normalt åsneserum i PBS innehållande 0,1 procent Tween 20 och 0,1 procent Triton-X-100, under 30 minuter vid RT i en fuktkammare. Primära antikroppar sattes till objektglasen och inkuberades över natten i en fuktig kammare vid RT. Objektglasen tvättades försiktigt i PBS och fluorescensmärkta sekundära antikroppar inkuberades i 2 timmar, vid RT eller över natten i en fuktig kammare.
Slutligen sköljdes objektglasen i 1 timme i PBS och monterades med Vectashield antifade monteringsmedia med DAPI (H-1200, Vector Laboratories, Burlingame, CA, USA). Bilderna togs med Zeiss Axioplan-mikroskop. Alla germinala centra (GC) i en lymfkörtelsektion mättes med ett automatiserat verktyg av Carl Zeiss-mikroskopet, och den genomsnittliga GC-storleken beräknades med Prism-mjukvaran. CD3 plus FoxP3 plus Tregs räknades i 5 slumpmässiga 200 × fält per vävnad för att beräkna det genomsnittliga antalet positiva celler per fält.
2.8. Statistisk analys
Statistiskt signifikanta skillnader mellan grupper beräknades genom enkelriktad ANOVA, Newman–Keuls multipla jämförelser, oparade/parade tvåsidiga Students t-test och P-värden < 0.05 ansågs vara statistiskt signifikanta. Statistiska skillnader beräknades med Graph Pad Prism.
3. Resultat
3.1. BCGphipps (BCGph)-priming följt av successiv intramuskulär hIFN- 2b Boosting Skyddar Balb/c-möss från intradermal utmaning med M. lepraemurium.
Vi har tidigare utvecklat ett prime-boost-protokoll baserat på successiv intramuskulär förstärkning av IFN efter BCG-vaccination av möss [42] med lovande skyddsresultat. Nyligen genomförda studier använde en BCG-rekombinant som uttrycker humant IFN- 2b för att behandla cancer i urinblåsan [51,53]. Därför, i den föreliggande studien, var vårt mål att analysera skyddet som induceras av BCGph-priming följt av hIFN- 2b-förstärkning i en murin modell av spetälska, enligt schemat som avbildas i figur 1.

Figur 1. Prime-boost-protokoll för att utvärdera skyddet av möss mot intradermal utmaning med M. lepraemurium. Grupper av Balb/c-möss (n=6) vaccinerades subkutant med en låg dos av BCGph (8 × 10³ CFU). Möss från varje grupp förstärktes intramuskulärt på på varandra följande dagar (30, 31 och 32 dagar efter vaccination) med PBS eller hIFN- 2b. Möss utmanades med 2 × 10⁶ livsduglig MLM åtta veckor efter den sista förstärkningen. Därefter avlivades möss och bioprover samlades in åtta veckor efter utmaningen. Utvecklingen av hudskador övervakades och mättes enligt beskrivningen i Material och metoder.
Kortfattat utmanades möss intradermalt med MLM, åtta veckor efter den tredje boosten med 300 IE hIFN- 2b. Sjukdomsprogression övervakades under de följande åtta veckorna. I slutet av denna period samlade vi inguinala lymfkörtlar för att detektera GCs och räkna upp Tregs och andra cellpopulationer genom immunfluorescens. Vi använde också immunfluorescens för att visualisera iNOS-produktion av aktiverade makrofager, lokaliseringen av nitrotyrosin (NT)-rester och ackumuleringen av Gr-1 plus myeloidceller i huden på våra experimentmöss. Dessutom samlade vi in serumet för att mäta cytokinerna och antikropparna mot glykolipider av MLM genom ELISA (Figur 1).
Först, för att utvärdera den skyddande effekten av BCGph-priming och hIFN{{0}}b-boosting mot intradermal utmaning hos möss med MLM, mätte vi hudskadorna och visualiserade bacillerkolonisering av huden med Ziehl-Neelsen-färgningen (Figur 2A–E). Huden på oprimade möss som endast fick vehikel (PBS), utan MLM-utmaning, visade inga baciller (Figur 2A). Mössen inokulerade med vehikeln och utmanade med MLM visade omfattande mängder MLM-baciller i huden (Figur 2B) medan priming av möss med BCGph ledde till en minskning av mykobakteriell tillväxt (Figur 2C). Successiv hIFN- 2b-administrering minskade också mykobakteriell tillväxt i huden jämfört med möss utmanade med MLM (Figur 2D). Mössen primade med BCGph och boostade med hIFN- 2b hade den lägsta mykobakteriella tillväxten (Figur 2E). I enlighet med dessa data utvecklade de friska mössen som utmanades med MLM som endast fick vehikel (PBS) de mest omfattande hudskadorna (35 ± 9,9 mm2), medan mössen som BCGph-primade hade hudskador av liknande storlek som de som utvecklades i mössen inokulerades med vehikeln och utmanades med MLM (13,5 ± 4,24 mm2) (Figur 2F). Mössen som subkutant injicerades med hIFN- 2b visade mindre hudskador (20 ± 1,77 µm2). Det bör noteras att möss som var BCGph-primade och förstärkta med hIFN- 2b visade en signifikant minskning av hudskadens storlek (5 ± 7,07 mm2) (p < 0,05) (Figur 2F).
 \
Figur 2. Hudskador och mykobakteriell tillväxt i Balb/c utmanad med M. lepraemurium. Skyddet av möss bedömdes genom utveckling av hudskador och visualisering av mykobakteriell tillväxt i hudskadan åtta veckor efter utmaning med MLM. Hudskador färgades med Ziehl-Neelsen. Representativa 400× förstoringsbilder av (A) oprimade möss och ohotade möss; (B) möss inokulerade med PBS och utmanade med MLM; (C) möss primade med BCGph och utmanade med MLM; (D) möss inokulerade intramuskulärt med hIFN- 2b och utmanade med MLM; (E) möss primade med BCGph, boostade med hIFN- 2b och utmanade med MLM; (F) Effektivt skydd är likvärdigt med antingen frånvaron av hudskador eller en signifikant minskning av hudskadens storlek, uttryckt i mm2, n=6 möss/grupp. * p < 0.05; ** p < 0,005; *** p < 0,0005 ansågs vara statistiskt signifikant.
3.2. Minimal hudpatologi hos möss grundade med BCGphipps och boostade med hIFNa 2bKorrelerar med minskad nitrotyrosinackumulation och försämrad neutrofilinfiltration
Kväveoxid är avgörande för att döda intracellulära patogener. Överdriven produktion av kväveoxid, superoxidradikal (O,- och väteperoxid leder dock till bildning av giftig och instabil peroxinitrit, en molekyl som reagerar med tyrosinrester på proteiner för att bilda den stabila NT 56-601. Även om peroxinitrit dödar mykobakterier, det skadar också immunceller [57-59].
Därför bestämde vi oss för att söka efter iNOS-producerande celler och neutrofiler i huden på våra experimentmöss genom immunfluorescens. Wesaw bakgrundssignaler för iNOS och NT och mycket få Gr-1 plus-celler i huden på möss som endast får PBS (Figur 3A). Ökad mykobakteriell belastning och förstorade nekrotiska lesioner i huden korrelerade med ackumuleringen av NT-rester i det nekrotiska hudområdet (58,59 av ovaccinerade (Figur 3B) och BCGph-primade möss utmanade med MLM (Figur 3C) Överensstämmer med en mer balanserad lokal inflammatorisk respons och förbättring av hudpatologi, NT och neutrofil infiltration minskade hos möss som fick på varandra följande ympningar med hIFN- 2b (Figur 3D) eller möss BCGph förberedd och boostad med hIFN 2b (Figur 3E). Försämrad infiltration med Gr{{11 }} plus neutrofiler och reducerade NT-områden sammanföll med det minsta inflammatoriska området i histologiska hudsektioner av möss som försetts med BCGph och förstärkts med hIFN- 2b (Figur 3F).

Figur 3. Skydd är associerat med minskad nitrotyrosinackumulering, försämrad neutrofilackumulering och förbättrad hudinflammation. Sektioner av hudskador färgades med en kombination av antikroppar specifika för iNOs (röd), NT (grön) och Gr-1 (vit). Representativ 200× bilder från (A) Hud av oprimade och ohanterade möss, (B) möss inokulerade med PBS och utmanade med MLM, (C) möss primade med BCGphipps och utmanade med MLM, ( D) möss inokulerade intramuskulärt med hIFN- 2b och utmanade med MLM och (E) möss primade med BCGph, boostade med hIFN- 2b och utmanade med MLM; (F, G) kvantifiering av det inflammatoriska området med automatiserade verktyg av Zeiss Axioplan-mikroskop, hudskador samlades in åtta veckor efter utmaning med MLM, grafik visar det genomsnittliga området som upptas av inflammatoriska celler i spetälska hudskador, uttryckt i µm2. Skalstång=100 µm. n=6 möss/grupp * p < 0.05; ** p < 0,005; *** p < 0,0005 ansågs vara statistiskt signifikant.
NO-produktionen var inte statistiskt signifikant jämfört med de andra experimentella grupperna, men i gruppen möss som BCGph-primad och boostad med hIFN- 2b, var koncentrationen av NO högre (68,28 µM/L ± 0 .889) än i PBS- och MLM-grupperna (62,79 µM/L ± 1.04), BCGph (63.37 µM/L ± 0.225), hIFN- 2b (62.57 µM/L ± 1.028 ) (Figur 3G).
3.3. Antiinflammatoriska cytokiner ökar i serumet hos möss som grundats med BCGphipps och förstärkts med hIFN- 2b
Pro- och antiinflammatoriska cytokiner mättes i serum från Balb/c-möss efter utmaningen med MLM. I överensstämmelse med det immunsuppressiva tillståndet orsakat av MLM, var koncentrationerna av proinflammatoriska cytokiner låga i serumet från Balb/c-möss inokulerade med PBS och utmanade med MLM (IFN- , 625 ± 442 pg/ml; TNF- , 697 ± 436 pg/ ml; IL-6, 68 ± 48 pg/ml; IL-17, 95 ± 67 pg/ml). Däremot hade de måttliga nivåer av antiinflammatoriska cytokiner i serumet (IL-10, 1763 ± 124 pg/mL och IL-4, 1250 ± 173 pg/mL). Även om möss skyddades av BCGph-priming och successiv förstärkning med hIFN- 2b, skilde sig de systemiska mängderna av proinflammatoriska cytokiner inte statistiskt från de hos möss som inokulerades med PBS och utmanades med MLM. Oväntat ökade koncentrationen för IL-4 (1875 ± 352 pg/mL, p < 0,05) och IL-10 (4250 ± 271 pg/mL) signifikant i serumet hos dessa möss jämfört med med möss inokulerade med PBS och utmanade med MLM (tabell 1). Dessa resultat tyder på att vårt vaccinationsprotokoll kan aktivera antiinflammatoriska vägar för att förhindra vävnadsskada.

3.4. Försämrad Treg-ackumulation i dränerande lymfkörtlar (DLN) hos möss grundade med BCGphipps eller förstärkta med hIFN- 2b
Med tanke på att Tregs producerar IL-10 [61,62], bestämde vi oss för att kvantifiera CD3 plus FOXP3 plus Tregs i de dränerande lymfkörtlarna (DLN), som ligger nära vaccinationsplatsen. I de oinfekterade mössen (PBS) var Tregs fortfarande närvarande (113 ± 9,8 CD3 plus FOXP3 plus Treg/200 × fält) (Figur 4A). Som väntat ökade Tregs signifikant hos möss som utmanades med MLM som inte fick vaccinet (BCGph) eller hIFN- 2b (214 ± 30 CD3 plus FOXP3 plus Tregs/200 × fält) (Figur 4B). På samma sätt observerades lägre nivåer av Tregs i mössen som primerades med BCGph (160 ± 26 CD3 plus FOXP3 plus Tregs/200 × fält) (Figur 4C) och mössen som fick hIFN- 2b (162 ± 33 CD3 plus) FOXP3 plus Tregs/200 × fält) (Figur 4D); mössen primade med BCGph och boostade med hIFN- 2b (127 ± 16 CD3 plus FOXP3 plus Tregs/200 × fält) (Figur 4E) hade en liknande täthet av Tregs än ovaccinerade möss utan hIFN- 2b förstärkning. Men efter att blint räknat CD3 plus FOXP3 plus Tregs i DLN hos våra experimentmöss fann vi att Tregs var signifikant reducerade i DLN hos möss efter BCGph priming (p=0.0013), hIFN- 2 b-ympning (p=0.0074), eller kombinerad BCGph-priming och hIFN- 2b-förstärkning (p=0.0013) jämfört med möss som utmanats med MLM (Figur 4E).

Figur 4. Försämrad ackumulering av regulatoriska T-celler (Tregs) i dränerande lymfkörtlar (DLN) hos möss primade med BCGphipps och boostade med hIFN- 2b. Möss avlivades och DLN:erna samlades in åtta veckor efter utmaningen med MLM. DLN färgades med antikroppar specifika för CD3 (röd) och FOXP3 (gröna kärnor) för att detektera CD3 plus FOXP3 plus Tregs genom immunfluorescens. (A) Basal ackumulering av Tregs i DLNs av ovaccinerade möss; (B) Tregs i DLN ökade efter MLM-utmaning och reducerades jämförelsevis i (C) BCGph-primad, (D) hIFN- 2b inokulerad och (E) BCGph-primed-hIFN- 2b boostade möss; (F) morfometrisk analys visar en signifikant minskning av tregs i DLNs för BCGph-primade/hIFN- 2b-förstärkta möss. Skalstapel=100 µm, n=6 möss/grupp * p < 0.05; ** p < 0.005; *** p < 0,0005 ansågs vara statistiskt signifikant.
3.5. BCGphipps Priming och hIFN- 2b Boosting påverkar GC:s svar i mus-DLN:er
Det finns speciella Tregs lokaliserade i GCs kända som T follikulära regulatoriska celler (TFRT De modulerar båda GCs svar och förhindrar generering av autoreaktiva plasmaceller (28,33). De minskade Tregs i DLNs antydde att GCs svar kunde släppas lös i möss förberedd med BCGph och förstärkt med hlFN-a 2b. I överensstämmelse med frånvaron av antigen stimulering upptäckte vi inte GCs i DLN:erna från oinfekterade möss. Figur 5A). Små GC:er fanns närvarande i DLN:erna hos icke-primade möss, utmanade med MMLigure 5B).

Figur 5. BCGphipps-priming och hFN-a 2b-boosting påverkar GC-svar i DLN efter MLM-utmaning. Möss avlivades åtta veckor efter utmaning med ML M. Dränerande lymfkörtlar (DLNs) färgades med antikroppar som specificerar prolifererande cellkärnantigen (PCNA, röda kärnor), jordnötsagglutinin (PNA, grön) och CD45R (B22{{13 }}, vit) för att identifiera GC som innehåller kompakta kluster av PCNA*PNA plus *B220låg GC B-celler. GCB-celler i DL Ns från (A) oprimade och ohantade möss; (B) möss inokulerade med PBS och utmanade med MLM; (C) möss primade med BCGph och utmaning med MLM; (D) möss boostades intramuskulärt med hlFN-a 2b och utmanade med MLM; (E) möss primade med BCGphboosted med hlFN-a 2b och utmanade med ML M; (F) GC mättes i individuella DL Ns av experimentella möss beräkna den genomsnittliga GC-storleken. Skalstapel=100 um.=6 möss/grupp. " p < 0.05, * p < 0.005; *** y < 0.0005 ansågs vara statistiskt signifikant.

Figur 5. BCGphipps-priming och hlFN-a 2b-boosting påverkar GC-svar i DLN efter ML M-utmaningen. Möss avlivades åtta veckor efter utmaning med ML M. Dränerande lymfkörtlar (DLNs) färgades med antikroppar specifika för prolifererande cellkärnantigen (PCNA, röda kärnor), jordnötsagglutinin (PNA, grön) och CD45R (B22{{ 13}}, vit) för att identifiera GC som innehåller kompakta kluster av PCNAPNA plus plus B220låg GC B-celler. GCB-celler i DL Ns från (A) oprimade och ohantade möss; (B) möss inokulerade med PBS och utmanade med MLM; (C) möss primade med BCGph och utmanade med MLM; (D) möss boostade intramuskulärt med hlFN-a 2b och utmanade med MLM; (E) möss förstärkta med BCGphboosted med hlFN-a 2b och utmanade med MLM; (F) GC mättes i individuella DLN från experimentmöss för att beräkna den genomsnittliga GC-storleken. Skalstapel=100 um. 1=6 möss/grupp. " y < 0.05. * y < 0,005, *** y < 0,0005 ansågs vara statistiskt signifikant.
Intressant nog hade möss primade med BCGph signifikant större GC än möss utmanade med MLM (Figur 5C). Mössen immuniserade med hlFN-a 2b (Figur 5D) hade GCs med en storlek jämförbar med de i möss som utmanats med MLM. Mössen primade med BCGph och boostade med hlFN-a 2b hade GCs med en mellanstorlek (Figur 5E). För att få en mer kvantitativ bedömning av GC-svaren i DLN:erna, beräknade vi den genomsnittliga GC-storleken i enskilda DLN-sektioner. I enlighet med våra observationer fann vi en signifikant minskning av den genomsnittliga GC-storleken i DLN:erna efter hlFN-a 2b-injektion och i BCGph-priming/hIFN-a 2b-förstärkningsprotokollet (Figur 5E).
3.6. Jämförbara nivåer av glykolipidspecifika antikroppar hos möss som utmanats med M. lepraemurium efter BCGphipps Priming och hIFN- 2b Boosting
Enligt de skillnader som observerades i GC-bildning och organisation, mätte vi koncentrationen av antikroppar specifika för glykolipider extraherade från MLM. Globalt sett visar våra resultat att de systemiska mängderna av olika klasser och isotyper av glykolipidspecifika antikroppar inte påverkades av vaccination, successiv administrering av hIFN- 2b eller BCGph priming/hIFN- 2b-protokollet ( Tabell 2). Möss förstärkta endast med hIFN- 2b framkallade en högre mängd IgG- och IgG1-antikroppar i serumet. IgG- och Ig-Gl-antikroppsnivåer var emellertid inte statistiskt signifikanta jämfört med de andra experimentella grupperna (tabell 2).

4. Diskussion
I den aktuella studien har vi visat att vårt prime-boosting-protokoll baserat på subkutan BCGphipps-priming och successiv intramuskulär boosting med ökande mängder hIFN- 2b skyddade möss från intradermal utmaning med MLM.
Det prime-boosting-protokollet förhindrade MLM-tillväxt i huden och förbättrade lokal patologi genom att minska NT-produktionen och neutrofil inflammation (Figur 3E). Det resulterade också i induktion av antiinflammatoriska cytokiner (IL-4 och IL-10) som sannolikt motverkade överdriven inflammation i huden och manifesterade sig systemiskt. Oväntat, även om den terapeutiska regimen minskade CD3 plus FOXP3 plus Tregs i DLNs (Figur 4E), förstärktes inte GC-svaren drastiskt (Figur 5E), och serumkoncentrationerna av glykolipidspecifika antikroppar var likartade i alla experimentgrupper utom i möss inokulerade endast med hIFN- 2b (tabell 2). Ändå stödjer våra experimentella data den potentiella användningen av BCG-priming adjuvanserad med intramuskulär IFN 2b-boosting, som en lovande immunterapi som förtjänar utforskning vid mänsklig spetälska.
De kliniska manifestationerna av spetälska korrelerar med det immunologiska spektrum som detekterats hos patienter och sträcker sig från LL till TT [2,4,14,18]. I allmänhet kännetecknas värdimmunitet mot M. leprae huvudsakligen av ett polariserat T-hjälparsvar (Th1/Th2). På ena sidan av spektrumet, även om LL kännetecknas av energi, finns det fortfarande viss reaktivitet mot mykobakteriella antigener och produktionen av IL-4 och IL-10. I kontrast, i TT, leder ett övervägande Th1-svar till den IFN-drivna aktiveringen av makrofager, vilket påskyndar elimineringen av bacillerna. Möss infekterade med MLM utvecklar typiskt lepromatös-liknande spetälska utan en tydlig dominans för humoral eller cellulär immunitet [18-20].
Skyddsantikroppar framkallade av infektion eller vaccination [63] produceras genom en process som kallas affinitetsmognad, som äger rum i germinala centra bildade i sekundära (mjälte, lymfkörtlar) eller tertiära lymfoida organ (TLO) som genereras i perifera vävnader [23,25] . Det är just i GC där produktionen av minnes-B-celler och långlivade antikroppsutsöndrande plasmaceller bidrar till att skapa långsiktig immunitet mot framtida möten med patogener. Den effektiva induktionen av GC-svar beror på samarbetet mellan flera celltyper, inklusive B-celler, T-follikulära hjälparceller (TFH), stickbara kroppsmakrofager och follikulära dendritiska celler (FDC) [64]. Faktum är att vacciner utlöser framgångsrika GC-svar och ektopiska germinala centra i lymfkörtlar [24,25,31,49].
Dessutom upprätthåller T-follikulära hjälparceller och T-follikulära regulatoriska celler [27-30] den känsliga balansen mellan induktion av effektiva antikroppssvar och autoimmunitet. Även om vi inte uteslöt autoimmunitetsinduktion i vår studie fokuserade vi fortfarande på effekterna av prime-boost-protokollet med BCGph och hIFN- 2b på Tregs från DLN. Skyddade möss hade signifikant färre CD3 plus FOXP3 plus Tregs i sina DLN. Men ytterligare studier krävs för att avgöra om några av dessa Tregs är T-follikulära hjälparceller som reglerar GC-reaktioner [27-30]. Dessa resultat kan antyda att effektiv induktion av skyddande immunitet i kombination med en liten minskning av tregs i DLN krävs för att kontrollera mykobakteriell tillväxt och för att förhindra patologisk inflammation i huden.
Tidigare studier har rapporterat de systemiska och mukosala effekterna av typ I IFN på T-follikulära hjälparceller och T-follikulära regulatoriska celler [19,32,64]. I själva verket ökar typ I IFN indirekt TFH i lymfkörtlar genom att stimulera T-cellspriming av dendritiska celler [34]. Typ I IFN främjar också isotypbyte i GC. Dessutom visade en nyligen genomförd studie att typ I IFN utlöser den CXCL13-drivna bildningen av TLO i lungorna [49].
Således kan induktionen av CXCL13 av typ I IFN förbättra rekryteringen av naiva B-celler till sekundära lymfoida organ och öka produktionen av antikroppsutsöndrande plasmaceller, globalt förbättra det långvariga minnet och plasmacellers immunologiska svar [23–25,64 ], särskilt i närvaro av adjuvans som poly IC [65]. Dessutom inducerar administrering av typ I IFN GC-bildning i lungorna hos patienter som drabbats av autoimmuna sjukdomar [31] eller tuberkulos [66,67]. Således kan CXCL13-blockad hjälpa till att behandla dessa kroniska inflammatoriska störningar [49]. I detta sammanhang observerade vi en mycket mild minskning av GC-storleken i DLN: er av skyddade prime-boostade möss (Figur 5E). Det behövs dock ytterligare forskning för att bättre definiera korrelationen mellan GC-bildning och skyddet som induceras i dessa prime-boostade möss. Under de experimentella inställningarna för priming med BCGph och intramuskulär hIFN- 2b-förstärkning (51), upplevde mössen i vår studie högre skydd genom administrering av BCGph-hIFN- 2b (80 procent) än genom enbart BCGph (60 procent), bestämt av frånvaron eller den lilla storleken på hudskadorna (Figur 2) och en jämförbar mängd IgG- och IgG1-antikroppar specifika för glykolipider av MLM (Tabell 2). Våra resultat kontrasterar med den ökade mängden IgG hos möss som skyddas av vaccination med en annan stam av BCG (Pasteur) [41]. Dessa data tyder på att typen av BCG-stam som används för att formulera vaccinet kan påverka resultatet av det humorala immunsvaret mot MLM eller M. leprae [51].
Dessutom har flera studier inom tuberkulos visat de potentiella och fördelaktiga effekterna av den heterologa prime-boost-strategin vid induktion av skyddande immunsvar [68-70]. Dessutom är det välkänt att typen och vägen för immunisering påverkar storleken på antikroppen och cellulära immunsvar. Överraskande nog visar skyddade möss signifikant högre IL-4 och IL-10 i serumet jämfört med möss som endast behandlats med PBS, BCGph eller hIFN- 2b enbart (tabell 1). Hur antiinflammatoriska cytokiner påverkar den skyddande immuniteten vid spetälska är för närvarande under utredning i vårt laboratorium. Men flera studier har visat att effektiv cellulär immunitet mot mykobakterier är beroende av en delikat balans mellan skydd och förebyggande av patologi [71]. Dessutom finns det bevis för induktion av båda cytokintyperna i andra experimentella modeller [72-75].
Våra samlade resultat tyder på att framgången för vårt prime-boost-protokoll beror på induktionen av ett balanserat immunsvar som effektivt eliminerar MLM i huden och begränsar vävnadsskador genom att inducera antiinflammatoriska cytokiner (IL-4 och IL10) som skyddar troligen immunceller [76,77]. Faktum är att IL-10 som produceras av inducerade Tregs modulerar inflammation vid slemhinneytor, speciellt de som är relaterade till inflammatorisk tarmsjukdom [77,78]. Dessa fynd motiverar en detaljerad kinetisk studie av B-cellsaktivering, GC-bildning och -reglering, generering av T-follikulära regulatoriska celler och NF-KB-aktivering i vårt prime-boost-system med BCGph och hIFN- 2b följt av MLM-infektion för att ha en mer mekanistisk förståelse för rollerna för immunceller och NF-KB-vägar i induktionen av skyddande immunitet i huden och lymfkörtlarna efter MLM-utmaning.
5. Slutsatser
Från dessa data kan vi dra slutsatsen att den successiva intramuskulära förstärkningen med hIFN- 2b förbättrar M. bovis BCG-vaccination, skyddar mot intradermal utmaning med MLM och avslöjar de lovande adjuvansegenskaperna hos humant IFN-a 2b i samband med BCG vaccination för att förhindra spetälskainfektioner i endemiska områden. Så vitt vi vet är detta den första rapporten om den terapeutiska effekten av BCGphipps i kombination med en farmaceutisk presentation av hIFN- 2b i en preklinisk modell av lepraliknande sjukdom.

Författarbidrag:
Studiedesign, GGG, OR-E., SOI-T. och JR-M.; studieuppförande, GGG, OR-E., SOI-T. och JR-M.; dataanalys: GGG, OR-E., SOI-T. och JR-M.; datatolkning, GGG, OR-E., SOI-T. och JR-M.; utarbetande av manuskript, GGG, OR-E., SOI-T. och JR-M.;revidering av manuskriptinnehåll, GGG, OR-E., SOI-T. och JR-M.; GGG, OR-E., SOI-T. och JR-M. ta ansvar för dataanalysens integritet. Alla författare har läst och samtyckt till den publicerade versionen av manuskriptet.
Finansiering:
GGG och OR-E. stöddes av SNI, CONACYT (Mexico City, Mexiko). GGG fick stöd från Perfil Prodep 2019–2022 och JR-M. stöddes av interna medel från Department of Medicine University of Rochester Medical Center och RO1AI111914.
Uttalande av institutionell granskningsnämnd:
Alla djurförsök utfördes efter godkännande av Institutional Animal Care and Management Committee (ZOO-010-2020). CIE-ENCB ZOO 016/2014, 7 mars 2014.
Informerat samtycke:
Inte tillämpbar.
Datatillgänglighetsförklaring:
Data kommer att delas enligt institutionella riktlinjer.
Erkännanden:
Vi är tacksamma mot Ricardo Villalobos för hjälp med IHC, och Rogelio Hernandez Pando (INCMNSZ, Mexico City), som tillhandahöll BCGphipps-stammen.

Intressekonflikt:
Författarna förklarar ingen intressekonflikt.
Referenser
1. VEM. Världshälsoorganisationen: Tuberkulos—Globala fakta 2011/2102. Genève: WHO Stop TB Dep. 2012. Tillgänglig online: http://www.who.int/tb/publications/2011/factsheet_tb_2011.pdf (tillgänglig den 1 februari 2021).
2. Fin, PE spetälska: Vad är det som "elimineras"? Tjur. Världshälsoorgan. 2007, 85, 1–2. [CrossRef]
3. Rambukkana, A. Hur riktar Mycobacterium leprae sig mot det perifera nervsystemet? Trender Microbiol. 2000, 8, 23–28. [CrossRef]
4. Rodriguez, JIA; Triellato, GL; Meirelles, NML; Teixeira, CC; Lyon, S.; Esteves, ARM Spetälska klassificeringsmetoder: En jämförande studie i remisskaraktär i Brasilien. Int. J. Infect. Dis. 2016, 45, 118–122. [CrossRef] [PubMed]
5. Geluk, A.; van der Ploeg, J.; Teles, OBR; Kees, L.; Franken, MC; Prins, C.; Wouter, DJ; Sarno, NE; Sampaio, EP; Otenhoff, THM Rationell kombination av peptider härledda från olika Mycobacterium leprae-proteiner förbättrar känsligheten för immundiagnos av M. leprae-infektion. Clin. Vacc. Immunol. 2008, 15, 522–533. [CrossRef] [PubMed]
6. Geluk, A.; Bobosha, K.; Schip, JJVDP-V.; Spencer, JS; Banu, S.; Martins, MVSB; Cho, SN; Franken, KLMC; Kim, HJ; Bekele, Y.; et al. Nya biomarkörer med relevans för spetälskadiagnos Tillämpliga i områden som är hyperendemiska för spetälska. J. Immunol. 2012, 188, 4782–4791. [CrossRef]
7. Geluk, A. Biomarkörer för spetälska: Skulle du föredra T (celler)? Lepr. Upps. 2013, 84, 3–12. [CrossRef] [PubMed]
8. Alcaïs, A.; Alter, A.; Antoni, G.; Orlova, M.; Nguyen, VT; Singh, M.; Vanderborght, PR; Katoch, K.; Mira, MT; Vu, HT; et al. Stegvis replikering identifierar en lågproducerande lymfotoxinallel som en viktig riskfaktor för spetälska som börjar tidigt. Nat. Genet. 2007, 39, 517–522. [CrossRef] [PubMed]
9. Avanzi, C.; Singh, P.; Truman, RW; Suffys, PN Molecular epidemiology of lepra: En uppdatering. Infektera. Genet. Evol. 2020, 86, 104581. [CrossRef]
10. Lastoria, JC; Abreu, MA Spetälska genomgång av de epidemiologiska kliniska och etnopatogena aspekterna-del 1. Bras. Dermatol. 2014, 89, 205–218. [CrossRef]
11. Rojas-Espinosa, O. Aktuella ämnen om profilerna för värdimmunologiskt svar på mykobakteriella infektioner; Recensionsbok; Tomioka, H., Ed.; Forskningsvägvisare: Trivandrum, Indien, 2009; s. 97–140.
12. Adams, LB; Pena, TM; Sharma, R.; Hagge, AD; Schurr, E.; Truman, RW Insikter från djurmodeller om spetälskas immunogenetik. En recension. Mem. Inst. Oswaldo. Cruz. 2012, 107, 197–208. [CrossRef]
13. Rojas-Espinosa, O.; Becerril-Villanueva, E.; Wek-Rodriguez, K.; Arce-Paredes, P.; Reyes-Maldonado, E. Pares i de bakre extremiteterna hos Mycobacterium lepraemurium-infekterade möss är resultatet av benskada och inte från nervpåverkan. Clin. Exp. Immunol. 2005, 140, 436–442. [CrossRef]
14. Modlin, LR Det medfödda immunsvaret vid spetälska. Curr. Opin. Immunol. 2010, 22, 48–54. [CrossRef]
15. Oliveira, RB; Ochoa, MT; Sieling, PA; Rea, TH; Rambukkana, A.; Sarno, EN; Modlin, RL Uttryck av toll-liknande receptor 2 på mänskliga Schwann-celler: en mekanism för nervskada vid spetälska. Infektera. Immun. 2003, 71, 1427–1433. [CrossRef] 16. MacMicking, J.; Xie, QW; Nathan, C. Kväveoxid- och makrofagfunktion. Annu. Rev. Immunol. 1997, 15, 323-350. [CrossRef]
17. Evans, T.; Buttery, L.; Carpenter, A.; Springall, DR; Polak, J.; Cohen, J. Cytokinbehandlade mänskliga neutrofiler innehåller inducerbart kväveoxidsyntas som producerar nitrering av intagna bakterier. Proc. Natl. Acad. Sci. USA 1996, 93, 9553–9554. [CrossRef] [PubMed]
18. Fonseca, AB; Simon, MD; Cazzaniga, RA; de Moura, TR; de Almeida, RP; Duthie, MS; Reed, SG; de Jesus, AR Inverkan av medfödda och adaptiva immunsvar på de differentiella kliniska resultaten av spetälska. Infektera. Dis. Fattigdom 2017, 6, 5–13. [CrossRef] [PubMed]
19. Sadhu, S.; Khaitan, BK; Joshi, B.; Sengupta, U.; Nautiyal, AK; Mitra, DK Ömsesidighet mellan regulatoriska T-celler och Th17-celler: relevans för polariserad immunitet vid spetälska. PLoS Negl. Trop. Dis. 2016, 10, e0004338. [CrossRef] [PubMed]
20. Rojas-Espinosa, O.; Wek-Rodríguez, K.; Arce-Paredes, P. Effekten av exogent peroxidas på utvecklingen av murin spetälska. Int. J. Lepr. Annat Mycobact. Dis. 2002, 70, 191–200.
21. Ischiropoulos, H. Biologisk tyrosinnitrering: en patofysiologisk funktion av kväveoxid och reaktiva syrearter. Båge. Biochem. Biophys. 1998, 356, 1–11. [CrossRef]
22. Ung, DB spetälska lipid tillhandahåller nyckeln till Schwann cellinträde. Trender Microbiol. 2001, 9, 52–54. [CrossRef]
23. Bannard, O.; Cyster, JG Germinal centra: Programmerad för affinitetsmognad och antikroppsdiversifiering. Curr. Opin. Immunol. 2017, 45, 21–30. [CrossRef] [PubMed] 24. Victora, DG; Nussenweig, MC Germinal centrerar. Annu. Rev. Immunol. 2012, 30, 429–457. [CrossRef] [PubMed]
25. Cirelli, KM; Crotty, SH Germinal center-förbättring genom utökad antigentillgänglighet. Curr. Opin. Immunol. 2017, 47, 64–69. [CrossRef]
26. Good-Jacobson, KL; Szumilas, CG; Chen, L.; Sharpe, AH; Tomayko, MM; Shlomchik, MJ PD-1 reglerar överlevnaden av B-celler från könscentrum och bildandet och affiniteten av långlivade plasmaceller. Nat. Immunol. 2010, 11, 535–542. [CrossRef]
27. Wollenberg, I.; Agua-Doce, A.; Hernández, A.; Almeida, C.; Oliveira, VG; Faro, J.; Graca, L. Reglering av könscentrumreaktionen av Foxp3 plus follikulära reglerande T-celler. J. Immunol. 2011, 187, 4553–4560. [CrossRef] [PubMed]
28. Litterman, MA; Pierson, W.; Lee, SK; Kallies, A.; Kawamoto, S.; Rayner, TF; Srivastava, M.; Divekar, DP; Beaton, L.; Hogan, JJ; et al. FOXP3 plus follikulära regulatoriska T-celler kontrollerar germinalcentrumsvaret. Nat. Med. 2011, 17, 975–982. [CrossRef]
29. Miles, B.; Connick, E. Kontroll av Germinal Center av follikulära regulatoriska T-celler under infektion. Främre. Immunol. 2018, 9, 2704–3710. [CrossRef]
30. Fu, W.; Liu, X.; Lin, X.; Feng, H.; Sun, L.; Li, S.; Chen, H.; Tang, H.; Lu, L.; Jin, W.; et al. Brist på T-follikulära regulatoriska celler främjar autoimmunitet. J. Exp. Med. 2018, 215, 815–825. [CrossRef]
31. Pitzalis, C.; Jones, GW; Bombardieri, M.; Jones, SA Ektopiska lymfoidliknande strukturer vid infektion, cancer och autoimmunitet. Nat. Rev. Immunol. 2014, 14, 447–462. [CrossRef]
32. Aloulou, M.; Carr, EJ; Gador, M.; Bignon, A.; Liblau, RS; Fazilleau, N.; Linterman, MA Follikulära regulatoriska T-celler kan vara specifika för det immuniserande antigenet och härröra från naiva T-celler. Nat. Commun. 2016, 7, 10579–10589. [CrossRef]
33. Vinuesa, CG; Sanz, I.; Cook, MC Dysregulation av germinala centra vid autoimmun sjukdom. Nat. Rev. Immunol. 2009, 9, 845–857. [CrossRef]
34. Cucak, H.; Yrlid, U.; Reizis, B.; Kalinke, U.; Johansson-Lindborn, B. Typ I-interferonsignalering i dendritiska celler stimulerar utvecklingen av lymfkörtel-residenta T-follikulära hjälparceller. Immunitet 2009, 31, 491–501. [CrossRef]
35. Desvignes, L.; Wolf, AJ; Ernst, JD Dynamiska roller av typ I och typ II IFN vid tidig infektion med Mycobacterium tuberculosis. J. Immunol. 2012, 188, 6205–6215. [CrossRef]
36. Teles, MBR; Graeber, GT; Krutzik, RS; Montoya, D.; Schenk, M.; Lee, JD; Komisopoulou, E.; Kelly-Scumpia, K.; Chun, R.; Iyer, SS; et al. Typ I-interferon undertrycker typ II-interferonutlösta humana antimykobakteriella svar. Science 2013, 339, 1448–1453. [CrossRef]
37. Ji, DX; Yamashiro, LH; Chen, KJ; Mukaida, N.; Kramnik, I.; Darwin, KH; Vance, RE Typ I interferon-driven känslighet för Mycobacterium tuberculosis medieras av IL-1Ra. Nat. Microbiol. 2019, 4, 2128–2135. [CrossRef]
38. Manca, C.; Tsenova, L.; Bergtold, A.; Freeman, SH; Tovey, M.; Musser, MJ; Barry, EC, 3:a; Freedman, HV; Kaplan, G. Virulens hos ett kliniskt isolat från Mycobacterium tuberculosis hos möss bestäms av misslyckande med att inducera immunitet av Th1-typ och är associerad med induktion av IFN-/. Proc. Natl. Acad. Sci. USA 2007, 98, 5752–5757. [CrossRef] [PubMed]
39. Telesca, C.; Angelico, M.; Piccolo, P.; Nosotti, L.; Morrone, A.; Longhi, C.; Carbone, M.; Baiocchi, L. Interferon-alfabehandling av hepatit D inducerar tuberkulosexacerbation hos en invandrare. J. Infect. 2007, 54, e223–e226. [CrossRef] [PubMed]
40. Giacomini, E.; Remoli, ME; Gafa, V.; Pardini, M.; Fattorini, L.; Coccia, EM IFN- förbättrar BCG-immunogeniciteten genom att verka på DC-mognad. J. Leukoc. Biol. 2008, 85, 462–468. [CrossRef] [PubMed]
41. Rivas-Santiago, CE; Guerrero, GG IFN- Förstärkning av Mycobacterium bovis Bacillus Calmette Güerin-vaccin främjat Th1-typ cellulärt svar och skydd mot M. tuberculosis-infektion. BioMed Res. Int. 2017, 2017, 6760. [CrossRef]
42. Guerrero, GG; Rangel-Moreno, J.; Islas-Trujillo, S.; Rojas-Espinosa, O. Successiv intramuskulär boostning med IFN-Alpha Skyddar Mycobacterium bovis BCG-vaccinerade möss mot M. lepraemurium-infektion. BioMed Med. Res. Int. 2015, 2015, 414027.
43. McNab, F.; Mayer-Barber, K.; Sher, A.; Wack, A.; O'Garra, A. Typ I-interferon vid infektionssjukdomar. Nat. Rev. Immunol. 2015, 15, 67–103. [CrossRef]
44. O'Shea, JJ; Visconti, R. Typ I IFN och reglering av TH1-svar: Gåtorna både löstes och uppstod. Nat. Immunol. 2000, 1, 17–19. [CrossRef]
45. González-Navajas, JM; Lee, J.; David, M.; Raz, E. Immunmodulerande funktioner av typ I-interferoner. Nat. Rev. Immunol. 2012, 12, 125–135. [CrossRef]
46. Le Bon, A.; Tufft, DF Typ I-interferon som stimulans för korspriming. Cytokine Growth Fact Rev. 2008, 19, 33–40. [CrossRef]
47. Bracci, L.; Canini, I.; Puzelli, S.; Sestili, P.; Venditti, M.; Spada, M.; Donatelli, I.; Belardelli, F.; Proietti, E. Typ I IFN är ett kraftfullt mukosalt adjuvans för en selektiv intranasal vaccination mot influensavirus hos möss och påverkar antigeninfångningen på mukosal nivå. Vaccin 2005, 23, 2994–3004. [CrossRef]
48. Soffa, RB; Atmar, RL; Cate, TR; Quarles, JM; Keitel, WA; Arden, NH; Wells, J.; Niño, D.; Wyde, PR Kontrasterande effekter av typ I-interferon som ett slemhinneadjuvans för influensavaccin hos möss och människor. Vaccin 2009, 27, 5344–5348. [CrossRef] [PubMed]
49. Denton, AE; Innocentin, S.; Carr, EJ; Bradford, BM; Lafouresse, F.; Mabbott, NA; Mörbe, U.; Ludewig, B.; Brudgum, JR; Good-Jacobson, KL; et al. Typ I-interferon inducerar CXCL13 för att stödja bildning av ektopiskt germinalt centrum. J. Exp. Med. 2019, 216, 621–637. [CrossRef]
50. Toledo, PTG; Batista-Silva, LR; Medeiros, RCA; Lara, FA; Moraes, MO Typ I-interferoner, autofagi och värdmetabolism vid spetälska. Främre. Immunol. 2018, 23, 806–817. [CrossRef]
51. Zhang, W.; Zhang, Y.; Zheng, H.; Pan, Y.; Liu, H.; Du, P.; Wan, L.; Liu, J.; Zhu, B.; Zhag, G.; et al. Genomsekvensering och analys av BCG-vaccinstammar. PLoS ONE 2013, 8, e071243. [CrossRef]
52. Wek-Rodriguez, K.; Silva-Miranda, M.; Arce-Paredes, P.; Rojas-Espinosa, O. Effekt av reaktiva syreförmedlare på livskraften och smittsamheten hos Mycobacterium lepraemurium. Int. J. Exp. Patol. 2007, 88, 137–145. [CrossRef]
53. Kim, SH; Cohen, B.; Novick, D.; Rubinstein, M. Mammalian Type I Interferon Receptors består av två subenheter: IFN-R1 och IFN-R2. Gene 1997, 196, 279–286. [CrossRef]
54. Luo, Y.; Chen, X.; Han, RA; O'Donnell, M. Rekombinant bacillus Calmette-Guérin (BCG) som uttrycker humant interferon-alfa 2B uppvisar förbättrad immunogenicitet. Clin. Exp. Immunol. 2001, 123, 264–270. [CrossRef] [PubMed]
55. Sun, E.; Nian, X.; Liu, C.; Fan, X.; Han, R. Konstruktion av rekombinant humant IFN -2b BCG och dess antitumöreffekter på blåscancerceller in vitro. Genet. Mol. Res. 2015, 14, 3436–3449. [CrossRef] [PubMed]
56. Prabhakaran, K.; Harris, EB; Kirchheimer, WF Bindning av 14C-märkt dopa av Mycobacterium leprae in vitro. Int. J. Lepr. Annat Mycobact. Dis. 1976, 44, 58–64.
57. Draper, P. Purification of Mycobacterium leprae. I handlingar i bilaga 4 till rapporten från det femte mötet i den vetenskapliga arbetsgruppen för immunologi av spetälska (IMMLEP), Genève, Schweiz, 24–26 juni 1980; Världshälsoorganisationen: Genève, Schweiz, 1980.
58. Ischiropoulos, H.; Nelson, J.; Duran, D.; Al-Mehdi, A. Reaktioner av kväveoxid och peroxinitrit med organiska molekyler och pepparrotsperoxidas: Interferens med bestämning av väteperoxid. Fri radikal. Biol. Med. 1996, 20, 373-381. [CrossRef]
59. Schön, T.; Hernandez-Pando, R.; Negesse, Y.; Leekassa, R.; Sundqvist, T.; Britton, S. Uttryck av inducerbart kväveoxidsyntas och nitrotyrosin i spetälska lesioner på gränsen. Br. J. Dermatol. 2001, 145, 809–815. [CrossRef]
60. Silva-Miranda, M.; WeK-Rodriguez, K.; Martinez, CE; Rojas-Espinosa, O. Uttryck av cyklooxygenas-2, alfa-1-syraglykoprotein och inducerbart kväveoxidsyntas i utvecklande lesioner av murin spetälska. Int. J. Exp. Väg. 2006, 87, 485–494. [CrossRef]
61. Hernández-Pando, R.; Schön, T.; Orozco, EH; Serafín, T.; Estrada-Garcia, I. Uttryck av inducerbart kväveoxidsyntas och nitrotyrosin under utvecklingen av experimentell lungtuberkulos. Exp. Toxisk. Patol. 2001, 53, 257–265. [CrossRef]
62. Izcue, A.; Coombes, JL; Powrie, F. Regulatory Lymphocytes, and Intestinal Inflammation. Annu. Rev. Immunol. 2009, 27, 313–338. [CrossRef]
63. Sakaguchi, S.; Miyara, M.; Costantino, CM; Hafler, DA FOXP3 plus regulatoriska T-celler i det mänskliga immunsystemet. Nat. Rev. Immunol. 2010, 10, 490–500. [CrossRef]
64. Plotkin, SA Korrelat av skydd inducerat av vaccination. Clin. Vaccin Immunol. 2010, 17, 1055–1065. [CrossRef] [PubMed]
65. Wu, H.; Chen, Y.; Liu, H.; Xu, L.-L.; Teuscher, P.; Wang, S.; Lu, S.; Dent, AL Follikulära regulatoriska T-celler undertrycker cytokinproduktion av follikulära hjälpar-T-celler och optimerar IgG-svar hos möss. Eur. J. Immunol. 2016, 46, 1152–1161. [CrossRef] [PubMed]
66. Jeyanathan, M.; Damjanovic, D.; Shaler, CR; Lai, R.; Wortzman, M.; Yin, C.; Zganiacz, A.; Lichty, D.; Xing, Z. Differentiellt präglad medfödd immunitet genom mukosal boost-vaccination bestämmer immunskyddsresultat mot tuberkulos, oberoende av T-cellsimmunitet. Mucosal Immunol. 2013, 6, 612–625. [CrossRef] [PubMed]
67. Jeyanathan, M.; Shao, Z.; Yu, X.; Harkness, R.; Jiang, R.; Li, J.; Xing, Z.; Zhu, T. AdHu5Ag85A Respiratorisk mukosal boost immunisering förbättrar skyddet mot lungtuberkulos hos BCG-primade icke-mänskliga primater. PLoS ONE 2015, 10, e0135009. [CrossRef]
68. Afhami, S.; Drumond, VA; D'Agositnio, MR; Jeyanathan, M.; Gillgrass, A.; Xing, Z. Avancera immunoterapeutiska vaccinstrategier mot lungtuberkulos. Främre. Immunol. 2020, 11, 557809. [CrossRef]
69. Torrado, E.; Robinson, RT; Cooper, AM Cellulärt svar på mykobakterier: balanserande skydd och patologi. Trender Immunol. 2011, 32, 66–72. [CrossRef]
70. Xu, X.; Gao, W.; Cheng, S.; Yin, D.; Li, F.; Wu, Y.; Sun, D.; Zhou, S.; Wang, D.; Zhang, Y.; et al. Antiinflammatoriska och immunmodulerande mekanismer av atorvastatin i en murin modell av traumatisk hjärnskada. J. Neuroinflamm. 2017, 14, 167–182. [CrossRef]
71. Azeem, W.; Maukon, BR; Appel, S.; Maegrete, AO; Kalland, KH Dubbla pro- och antiinflammatoriska egenskaper hos dendritiska celler från monocyter. Främre. Immunol. 2020, 11, 438–453. [CrossRef]
72. Sultana, S.; Bishay, B. Neutralization of TNFR-1 and TNFR-2 modulerar S. aureus-inducerad septisk artrit genom att reglera nivåerna av pro-inflammatoriska och anti-inflammatoriska cytokiner under sjukdomens fortskridande. Immunol. Lett. 2018, 196, 33–51. [CrossRef]
73. Pornografi, D.; Gilligan, MM; Huang, S.; Gartung, A.; Cortes-Puch, I.; Sime, PJ; Phipps, RP; Serhan, CHN; Hammock, BD Inflammationsupplösning: En dubbelsidig metod för att avvärja cytokinstormar i COVID-19 Cancer Metastasis Rev. 2020, 39, 337–340. [CrossRef]
74. Longhi, MP; Trumpfheller, C.; Idoyaga, J.; Caskey, M.; Matos, I.; Kluger, C.; Salazar, AM; Colonna, M.; Steinman, RM Dendritiska celler kräver ett systemiskt typ I-interferonsvar för att mogna och inducera CD4 plus Th1-immunitet med poly-IC som adjuvans. J. Exp. Med. 2009, 206, 1589–1602. [CrossRef]
75. Khader, SA; Guglani, L.; Rangel-Moreno, J.; Gopal, R.; Junecko, BAF; Fountain, JJ; Martino, C.; Pearl, JE; Tighe, M.; Lin, Y.-Y.; et al. IL-23 krävs för långtidskontroll av Mycobacterium tuberculosis och B-cellsfollikelbildning i den infekterade lungan. J. Immunol. 2011, 187, 5402–5407. [CrossRef] [PubMed]
76. Choreño-Parra, JA; Bobba, S.; Rangel-Moreno, J.; Ahmed, M.; Mehra, S.; Rosa, B.; Martin, J.; Mitreva, M.; Kaushal, D.; Zúñiga, J.; et al. Mycobacterium tuberculosis HN878-infektion inducerar mänskliga B-cellsfolliklar hos möss. J. Infect. Dis. 2020, 221, 1636–1646. [CrossRef] [PubMed]
77. Schmidt, EG; Haribhai, D.; Williams, JB; Aggarwal, P.; Jia, S.; Charbonnier, LM; Yan, K.; Lorier, R.; Turner, A.; Ziegelbauer, J.; et al. IL-10 producerad av iTreg-celler kontrollerar kolit och patogena ex. Treg-celler under immunterapi. J. Immunol. 2012, 189, 5628–5648. [CrossRef]
78. Rubtsovo, YP; Rasmussen, JP; Chi, Y.; Fontenot, J.; Castelli, I.; Ja, X.; Treuting, P.; Siewe, I.; Roers, A.; Henderson, WRJ; et al. Regulatoriskt T-cellshärlett interleukin-10 begränsar inflammation vid miljögränssnitt. Immunitet 2018, 28, 546–558. [CrossRef] [PubMed]
For more information:1950477648nn@gmail.com