Del 2: Aktivering av en hippocampus CREB-pCREB-miRNA MEF2-axel modulerar individuell variation av rumslig inlärning och minnesförmåga
Mar 18, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Cistanche kan förbättra minnet
Med tanke på dessa fynd undersökte vi nästa om uppreglerat hippocampus miR-466f-3p uttryck hos möss vid rumslig inlärning ochminnebildning påverkade också neuronal morfologi in vivo. Signifikant nog fann vi att den genomsnittliga ryggradstätheten för hippocampusneuronerna hos GLN-möss var högre än den hos PLN-möss, vilket avslöjades av Golgi-impregnering av pyramidal
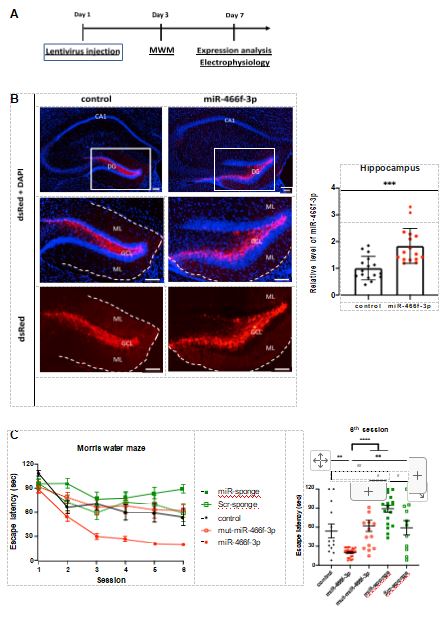
Figur 3. Effekter av förändringar av hippocampus miR-466f-3p uttrycksnivåer på mus MWM-prestanda
(A) Experimentell tidslinje för MWM-uppgiften, uttrycksanalys eller elektrofysiologisk mätning av mushjärnorna efter lentivirusinjektion.
(B) Vänster paneler: uttryck av dsRed i mushippocampus. Representativa IF-bilder med låg och hög förstoring av hippocampus från möss infekterade med rekombinanta lentivirus som uttrycker dsRed-only som en kontroll (vänster kolumn av bilder) eller miR-466f-3p plus dsRed (höger kolumn med bilder). De inrutade områdena på de två översta bilderna är förstorade och visas nedan. Skalstänger, 100 mm. De streckade linjerna anger gränserna för GD. Kärnor färgades med DAPI. GCL, granulcellskikt; ML, molekylärt lager. Höger histogram, relativa uttrycksnivåer av miR-466f-3p i mushippocampus infekterad med lentivirus som uttrycker kontroll eller miR-466f-3p, som analyserats med RT-qPCR ( n=16 per grupp).
(C) MWM-prestanda hos möss infekterade med olika rekombinanta lentivirus, förpackade med användning av fem olika plasmider som uttrycker dsRed-only, miR-466f-3p, mut-miR-466f{ {5}}p respektive miR/SCR-svampar i sin hippocampus (n=13, 26, 16, 19 respektive 11 per grupp). Vänster panel: undvik latens under träningen. Höger panel: individuell escape latens på den 6:e sessionen.
Data som visas i (B) presenteras som medelvärde ± SD, och data som visas i (C) presenteras som medelvärde ± SEM. Statistisk signifikans bedömdes genom oparat t-test (B), tvåvägs ANOVA med Bonferroni post hoc-jämförelse (C, vänster panel) eller en-ANOVA med Tukeys post hoc-test (C, höger panel). Statistiska skillnader: #p < 0.05,="" **/##p="">< 0.01="" och="" ****p="">< 0.0001;="" *mir-466f-3p="" kontra="" andra;="" #mir-svamp="" kontra="">
neuroner i GLN och PLN mus hippocampus (Figur S3). Dessa fynd visar att uppreglering av hippocampus miR-466f-3p främjar neuritutväxt och dendritisk ryggradsbildning, vilket liknar induktionen av ryggradstäthet observerad i hippocampus hos GLN-möss i förhållande till PLN-möss.
miR-466f-3p modulerar positivt mus rumslig inlärning ochminneprestanda, såväl som synaptisk plasticitet
För att undersöka om miR-466f-3p positivt reglerar mus rumslig inlärning ochminnebildning använde vi en rekombinant lentivirusinfektionsmetod för att överuttrycka miRNA i musens hippocampus. Mössen analyserades 7 dagar efter lentivirusinjektion i DG (Figur 3A). Representativa bilder av höftuttrycksnivåerna för miR-466f-3p var verkligen förhöjda i miR-466f-3p-överuttrycksgruppen jämfört med kontrollgruppen (höger histogram i figur 3B). Vi fann att möss med hippocampus överuttryck av miR-466f- 3p och utsatta för MWM-uppgiften uppvisade flyktlatenser på 88 ± 5 s i den första sessionen och 19 ± 1 s i den 6:e sessionen (röd pricklinje, figur 3C), som var bättre än för vektorkontrollmöss (svart linje) eller mutantkontrollmöss (röd cirkellinje) och liknande flyktlatenserna för GLN-möss som beskrivs i figur 1A. Parallellt undersökte vi effekten av miR-466f-3p funktionsförlust på rumslig inlärning ochminnegenom att hämma miR-466f-3p med hjälp av miR-svamp. Noterbart är att MWM-prestandan hos möss där hippocampus miR-466f-3p fångades av miR-svampen liknade den hos PLN-möss, dvs. de lärde sig inte att hitta plattformen ens genom att den sista sessionen (heldragen grön fyrkantig linje,
Figur 3C). Dessutom verkade möss injicerade med lentivirus inte ha stört homeostatisk plasticitet, eftersom vissa möss i varje grupp hade lärt sig eller åtminstone var i färd med att lära sig under den senaste sessionen (Figur 3C, höger histogram).
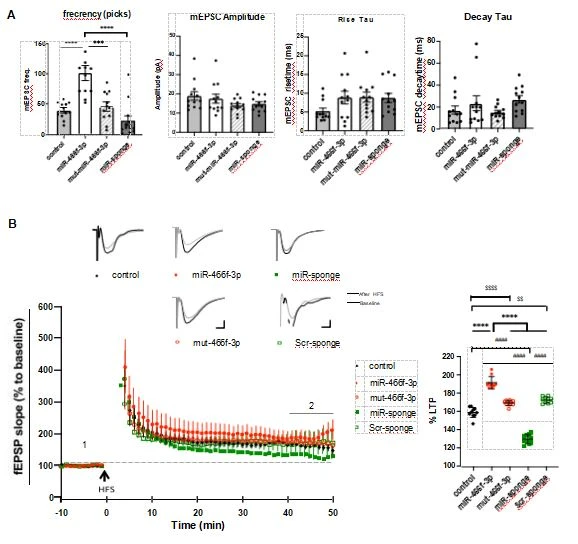
Med tanke på att överuttryck av miR-466f-3p i mushippocampus förbättrade deras inlärning ochminnekapacitet, analyserade vi den jämförande elektrofysiologin för odlade hippocampusneuroner som uttrycker olika nivåer av miR-466f-3s. Den miniatyr excitatoriska postsynaptiska strömmen (mEPSC) från DIV14 hippocampus neuroner som överuttrycker miR-466f-3p eller mut-miR-466f-3p, miR-svamp eller kontroll var inspelad med hjälp av helcellspatch-klämmor. Medan det inte fanns några signifikanta skillnader i mEPSC-amplituden, ökningen av Tau eller avklingningen av Tau bland de fyra provuppsättningarna, var mEPSC-frekvensen för neuroner som överuttryckte miR-466f-3p signifikant högre jämfört med andra grupper (Figur 4A), vilket indikerar att postsynaptiska glutaminerga receptorer var starkare aktiverade vid överuttryck av miR-466f- 3p.

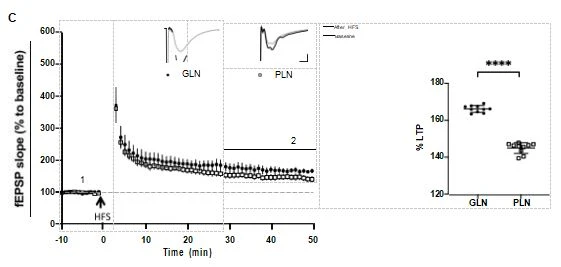
Vi mätte sedan långsiktig potentiering (LTP) för att direkt bestämma rollen för miR-466f-3p i synaptisk plasticitet in vivo. Vi injicerade musens hippocampus med rekombinant lentivirus som beskrivs i figur 3 och inducerade sedan LTP-skivor i hippocampus genom tetanisk stimulering (tre tåg av högfrekvent stimulering [3xHFS]) av Schaffers kollaterala väg. Vi fann att vårt protokoll inducerade LTP i alla grupper, vilket framgår av den ihållande ökningen av fältets excitatoriska postsynaptiska potentialer (fEPSPs) i cornu ammonis 1 (CA1) regionen (Figur 4B, vänster panel). LTP var starkare i miR-466f-3p-överuttryckande skivor (188 procent ± 2 procent av baslinjen vid 40–50 minuter efter stimulering, medelvärde ± SEM) jämfört med mutant (169 procent ± 1 procent) av baslinjen), SCR-svamp (173 procent ± 3 procent av baslinjen) och kontrollvirusinfekterade skivor (159 procent ± 2 procent av baslinjen), som miR-466f-3p-hämning av miR-svamp minskade LTP (128 procent ± 1 procent av baslinjen) i förhållande till kontroller (Figur 4B, höger panel). Vi mätte också LTP för GLN- och PLN-grupperna efter träning. Respektive data avslöjade också signifikanta skillnader i fEPSP-lutning i CA1-regionen mellan GLN- och PLN-grupperna (Figur 4C). En förhöjd nivå av miR-466f-3p förbättrar således LTP och synaptisk plasticitet som i sin tur kan främja inlärning ochminnemöss förmåga. Tillsammans visar data som presenteras i figurerna 2, 3 och 4 att miR-466f-3p spelar en kritisk positiv roll i rumslig inlärning ochminnebildning, troligen genom att förbättra ryggradsbildning, LTP och styrkan hos synaptisk plasticitet.
Mef2a-mRNA är ett regulatoriskt mål för miR-466f-3p
Vi genomförde en bioinformatikanalys för att identifiera potentiella mål-mRNA som regleras genom bindning av miR-466f-3p till deras 30 UTR. Bland kandidaterna vi identifierade var Mef2a mRNA som kodar för MEF2A. Intressant nog visade sig MEF2A-uttryck tidigare vara nedreglerat efter MWM-träning, och överuttryck av denna faktor utövade en negativ effekt på möss prestanda (Cole et al., 2012). Därför använde vi en luciferasreporteranalys för att undersöka om miR-466f-3p reglerar translationen av Mef2a-mRNA genom att binda till dess 30 UTR. Vi infogade vildtyps- eller mutanta Mef2a 30 UTR-sekvenser nedströms om ett SV40-promotordrivet luciferas-cDNA (Luc), vilket resulterade i reporterplasmiden psiCHECK2-MEF2A 30 UTR eller psiCHECK2- mut-MEF2A 30 UTR (Figur 5A). Som visas i det vänstra histogrammet i figur 5B, försvagade samuttryck av miR-466f-3p uttrycket av luciferas riktat av Mef2a 30 UTR. Denna effekt verkade vara beroende av interaktionen mellan miR-466f-3p och Mef2a 30 UTR sedan mutation av antingen det förutsagda bindningsstället för miR-466f-3p på Mef2a 30 UTR (50-UGU- GUAU-30) eller fröregionen för miR-466f-3p (50-AUACACA-30) genom att känna igen Mef2a 30 UTR upphävde den hämmande effekten av miR-466f-3p på luciferasaktivitet (Figur 5B, mittenhistogram). Dessutom eliminerade samuttryck av miR-svampen, men inte CR-svampen, också den repressiva effekten av miR-466f-3p på luciferasaktivitet (Figur 5B, höger histogram). Noterbart var att varken överuttryck av miR-466f-3p eller miR-svamp hade någon effekt på nivåerna av Mef2a-mRNA i primära hippocampusneuroner (Figur 5C), men de minskade respektive ökade nivån av MEF2A-protein (Figur 5D). Vi fann också att överuttryck av miR-466f-3p respektive miR-svamp nedreglerade eller uppreglerade mRNA-nivån av aktivitetsreglerat cytoskelettassocierat protein (Arc) i primära hippocampala neuroner (Figur 5C) , som var ett känt nedströmsmål positivt reglerat av MEF2A (Flavell et al., 2006)

Vi utförde också fluorescens in situ hybridisering (FISH) för att detektera miR-466f-3p och kombinerade det med IF-märkning av MEF2A i DIV14 primära hippocampala neuroner utan eller med forskolinbehandling. Forskolin är känt för att inducera kemisk LTP och aktivera adenylylcyklas, vilket höjer intracellulära cAMP-nivåer. Vi observerade nukleär kolokalisering av MEF2A med miR-466f- 3p, som illustreras av de representativa bilderna i figur 5E. Efter forskolinstimulering ökade emellertid miR-466f-3p-signalen i både soma och dendriter, medan MEF2A-signalen i
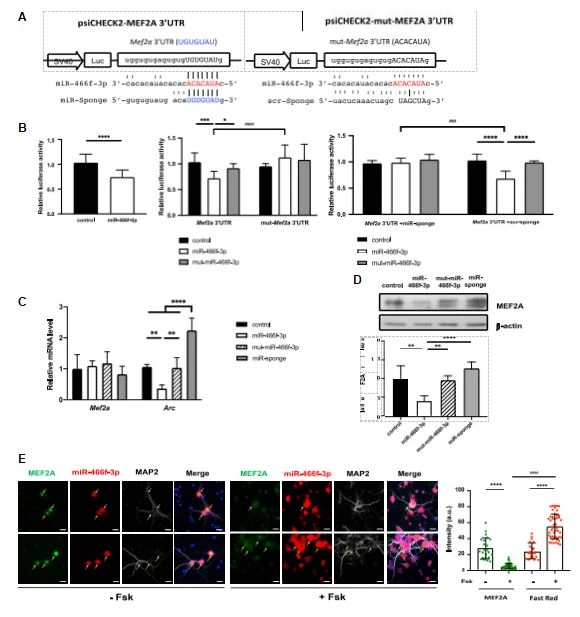

kärnan minskade, vilket framgår av de ömsesidiga förändringarna av intensiteten hos MEF2A- respektive Fast Red-signalerna för de individuella neuronala cellerna (Figur 5E). Sammanfattningsvis indikerar data i figurerna 5A–5E att miR-466f-3p negativt reglerar uttrycket av MEF2A-protein genom att binda till 30 UTR av Mef2a-mRNA och följaktligen undertrycka dess translation.
I enlighet med de ovan beskrivna resultaten fann vi att hippocampusnivåer av MEF2A-protein nedreglerades i GLN-möss efter MWM-träning, men inte i PLN-möss (Figur 5F). Dessutom var de relativa nivåerna av MEF2A i individuella GLN-möss (prickar) och PLN-möss (kvadrater) omvänt korrelerade med nivåerna av miR-466f-3p (R=0.60, Figur 5G). Således heterogena mönster av rumsligt lärande ochminneförmågan moduleras av stokastiska ökningar av hippocampus miR- 466f-3p i enskilda möss och därav följande minskningar av MEF2A vid stimulering av neuronal aktivitet.
Stokastisk aktivering av hippocampus CREB och åtföljande transkriptionell uppreglering av miR- 466-669-klustret under MWM-träning
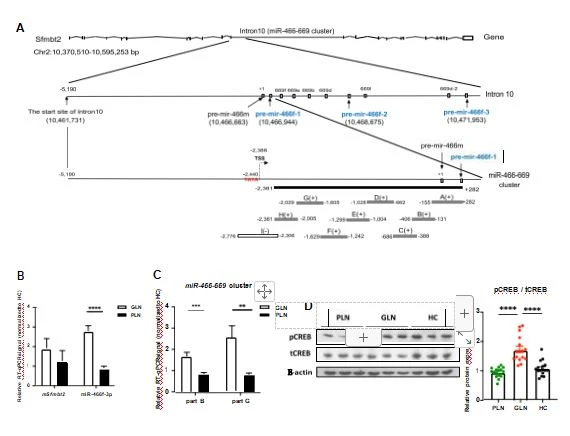
Vi undersökte mekanismerna genom vilka miR-466f-3p i mushippocampus kunde uppregleras stokastiskt av MWM-uppgiften. Det finns tre miRNA-prekursorer som kodar för miR-466f-3p, som alla tillhör det gnagarspecifika miR-466-669-klustret som finns i intron 10 av dess värdgen, mSfmbt2 (Inoue et al. ., 2017) (Figur 6A). Intressant nog, till skillnad från miR-466f-3p, fanns det ingen signifikant skillnad i uttrycksnivåerna för mSfmbt2 mellan GLN och PLN-grupperna (Figur 6B), vilket tyder på att miR-466-669-klustret kan koda ett separat transkript istället för att vara en del av det primära transkriptet av mSfmbt2. Följaktligen designade vi flera uppsättningar primrar för att identifiera det förmodade primära transkriptet av miR-466-669-klustret med RT-qPCR. Som visas i figur 6A, ett långt PCR-fragment (plus 282 till 2 381), tillsammans med en serie överlappande qPCR-band, nämligen A (plus 282 till 115), B (131 till 406), C (388 till 686), D ( 662 till 1 028), E ( 1 004 till 1 299), F ( 1 242 till 1 629), G ( 1 605 till 2 029) och H( 2 005 till 2 381), kunde detekteras i mushippocampus, men inte del I ( 706 till 2, 7 ) (data visas inte). Dessa data stödjer att miR-466-669-klustret kodade ett långt transkript nära cirka 2 388 bp uppströms om den första miRNA-prekursorn (dvs. pre-mir-466m, betecknad plus 1i Figur 6A). Anmärkningsvärt nog, i likhet med vad vi hittade för miR-466f-3p, var den genomsnittliga nivån av detta transkript i hippocampus hos GLN-möss högre än för PLN-möss (Figur 6C). Alltså förbättrat lärande ochminneförmågan hos GLN-möss beror på transkriptionell aktivering av miR-466-669-klustret.
Aktivering av nukleär CREB genom fosforylering under MWM-uppgifter eller i andra former av lärande är ett kritiskt steg för att omvandla kortsiktigt till långsiktigtminne(Lisman et al., 2018; Rogerson et al., 2014). Därför undersökte vi om de varierande nivåerna av miR-466f-3p bland enskilda möss som genomgick MWM-uppgiften kan vara korrelerade med aktiveringsstatusen för CREB. För att utforska denna idé undersökte vi först fosforyleringsnivåerna av hippocampus CREB i enskilda möss. Som visas i figur 6D förstärktes CREB-aktivering (genom fosforylering vid rest S-133) i GLN-möss i förhållande till PLN- och HC-möss. Vi bekräftade också att miR-466f-3p verkligen samuttrycktes med pCREB i neuroner genom att utföra miRNA ISH kombinerat med IF-färgning av pCREB och MAP2 i primära hippocampala neuroner (Figur S2A). Dessutom var de primära transkriptnivåerna av miR- 466-669-klustret positivt korrelerade med pCREB i GLN-möss (R=0.52), medan det var negativt korrelerat med pCREB i PLN-möss (R=0 .71) (Figur 6E). Vi kollade efter en korrelation mellan nivåerna av en annan aktiv faktor, fosfo-extracellulärt signalreglerat kinas (pERK), och de primära transkriptnivåerna i miR-466-669-klustret. Vi fann att båda typerna av MWM-tränade möss visade positiva korrelationer mellan miR-466-669-klustersignal och pERK (R=0.59 respektive 0.48; Figur S4A), och det fanns ingen skillnad i pERK/ tERK uttryck mellan dessa två grupper (Figur S4B). För att ytterligare klargöra effekten av CREB-aktivering på transkriptionell uppreglering av deras -466-669kluster och följaktligen,

induktion av miR-466f-3p,weuseenspecificCREBinhibitor,666- 15 (Xie et al., 2015), i kombination med forskolinbehandling av DIV14 primära hippocampala neuroner. Forskolin är känt för att aktivera CREB-fosforylering (Malhotra et al., 2015). Vi fann att förbehandling av primära hippocampusneuroner med 666-15 blockerade forskolin-inducerad CREB-aktivering (Figur 6F) och minskade nivåerna av miR-466f-3p och miR-466-669 kluster transkription (figur 6G och 6H). Samtidigt reducerades mRNA-nivåer av de kända pCREB-målgenerna nurr1 och homer1a (Bridi et al., 2017; Jensen et al., 2017) vid 666-15 behandling (Figur 6H). Sammantaget visar figur 6 att stokastisk aktivering av CREB i hippocampus av en subpopulation av inavlade möss som genomgår MWM-uppgift inducerar transkription av miR-466-669-klustret och, följaktligen, induktion av miR-466f{{23 }}p, vilket förbättrar deras rumsliga inlärning ochminneförmåga att prestera bättre i uppgiften.
DISKUSSION
Vi har utforskat den möjliga rollen för miRNA:er för att modulera den varierande förmågan hos rumslig inlärning ochminnebland inavlade C57BL/6J möss. Vi föreslår att stokastisk aktivering av CREB och åtföljande uppreglering av hippocampus miR-466f-3p står för den större rumsliga inlärningen ochminneförmågan hos en undergrupp av våra testmöss, troligen på grund av miR-466f-3p som förmedlar translationell hämning av Mef2a-mRNA som kodar förminnenegativ regulator MEF2A. Våra resultat ger ett scenario som visar den funktionella och evolutionära rollen för en specifik miRNA i reglering av kognition genom stokastisk induktion av en CREB-pCREB-miR-466f-3p-MEF2A-axel genom miljöstimuli.
MWM-uppgiften har använts i stor utsträckning för att undersöka den varierande förmågan hos rumslig inlärning ochminneför gnagare. Under normala förhållanden använder gnagare distala signaler för att orientera sig, vilket gör att de kan lära sig och memorera platsen för den dolda plattformen i uppgiften. De flesta av våra testinavlade C57BL/6J-möss (62 procent) uppvisade ett normalt mönster av flyktlatens, och hittade plattformen inom 30 s vid session 3:e-6 (Figur 1A, GLN). Däremot lärde sig en grupp möss (38 procent) inte uppgiften ens vid den 6:e sessionen (PLN). Noterbart har vi också utsatt mössen för två andra igenkänningstest. Det första var testet för novel object recognition (NOR), som är ett enda försök baserat på medfödd utforskning utan förstärkning eller stress för att motivera beteende (Leger et al., 2013). Korrelationen mellan NOR- och MWM-uppgifterna när det gäller musprestanda är dålig (R {{1{{20}}}}.13), vilket liknar korrelationen mellan NOR-prestanda och hippocampus uttrycksnivåer av miR-466f-3p (R=0.01; data visas inte). NOR-testet avslöjade inte heller några skillnader i diskrimineringsindex mellan MWM GLN- och PLN-grupperna (0,36 ± 0,25 mot 0,29 ± 0,18; figur S1B). Den andra rumsliga lärande ochminne-beroende uppgift vi har tillämpat är Barnes labyrint (BM), som liknar MWM. Det är baserat på antagandet att gnagare som placeras i en aversiv miljö bör lära sig och komma ihåg platsen för en utrymningslåda som ligger under plattformens yta. Som visas i figur S1C har vi funnit att musprestationer i BM-probförsöken också är positivt korrelerade med hippocampus-uttrycksnivåerna för miR-466f-3p. Således induktion av CREB-pCREB-miR-466f-3p-MEF2A-axeln i hippocampus under inlärning ochminnebildning är rumsligt kontextberoende.