

Del 2: Varför cytokininväxthormoner har neuroprotektiv aktivitet i in vitro-modeller av Parkinsons sjukdom?
Mar 22, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Snälla klicka här till del 1
Cistanche ört har en mycket bra neuroprotektiv effekt
2.6. Anti-apoptotiska effekter av cytokininer bestämt av kaspas-3/7 aktivitetsmätningar
Som framgår av PI-färgningsanalyserna som beskrivs ovan, inducerade SAL ökningar i SH-SY5Y-cellernas dödlighet. Eftersom SAL är associerat med både apoptos och nekros [51] undersökte vi också aktiveringen av kaspas-3 och 7 (casp-3/7) som en specifik markör för apoptos (exekveringsfasen) [52] efter att ha exponerat cellerna för CKs. Caspas-3/7 aktiviteter som registrerades efter behandling med var och en av testföreningarna normaliserades med avseende på de som registrerades efter behandling med 50{{30}} uM SAL (inställd på 100 procent). Som visas i figur 4 hämmade den välkända kaspasinhibitorn Ac-DEVD-CHO (inkluderad som en specifik, apoptosrelaterad kontroll) kraftigt kaspas-3/7-aktivitet vid submikromolära koncentrationer (till 36,3 ± 2,66 och 25,2) ± 2,69 procent av nivåerna i celler behandlade med enbart SAL vid 0,05 respektive 0,5 uM). Liknande nivåer av hämning har tidigare observerats [53] i olika in vitro SH-SY5Y-cellbaserade modeller av neurodegeneration. Den positiva kontrollen NAC minskade också signifikant kaspas-3/7-aktiviteten till 88,7 ± 1,87 procent och 78,5 ± 2,56 procent av SAL-inducerade nivåer vid 100 uM respektive 1000 uM. De testade CK hade ett brett utbud av effekter på caspase-3/7-aktiviteter. Intressant nog från CK-ribosiderna hade endast cZR signifikanta effekter på aktiviteterna vid 0,1 uM (reducerade dem till 83,3 ± 4,33 procent av respektive SAL-inducerade nivåer), medan iPR vid 1 uM inte gav någon signifikant minskning av casp{{60} ,7. Slutligen minskade K3G kaspas-3/7-aktivitet med maximal effekt vid 10 uM (till 81,7 ± 4,31 procent av den SAL-inducerade nivån). Sammantaget inducerade SAL en 1.6-faldig ökning av kaspas-3/7-aktivitet jämfört med friska kontrollceller (CTR, figur 4), i enlighet med resultat från en tidigare studie, där en liknande SAL-koncentration (400 uM) och samma cellinje användes [54]. NAC är känt för att påverka kaspas-3/7-aktivitet i flera modeller avneuronaldöd [55–58]. De resultat som presenteras här ger dock den första demonstrationen av deras kaspas-3/7 i en SH-SY5Y-cellbaserad SAL-inducerad modell avneuronaldöd. Den positiva kontrollen reducerade kaspas-3/7-aktiviteten inducerad av 500 uM SAL på ett liknande sätt som CK, men cZR och K3G var effektiva även vid submikromolära eller mikromolära koncentrationer. Andra studier med stressmodeller associerade med PD (proteasomhämmare MG 132- eller H2O2-inducerad toxicitet i SH-SY5Y-celler [17] och fibroblaster [15]) och Huntingtons sjukdom (serumsvältmodell i PC12-celler [19]) har också visat att CK:erna K och tZR kan ha anti-apoptotisk (caspas-3) aktiviteter [17], och att både K och tZR kan ha anti-ålderdomsaktiviteter [17,19] . Dessutom, samband mellan minskande casp-3,7 aktivering ochneuroprotektivaaktivitet rapporterades för SAL och SAL-relaterade modeller [54,59,60].
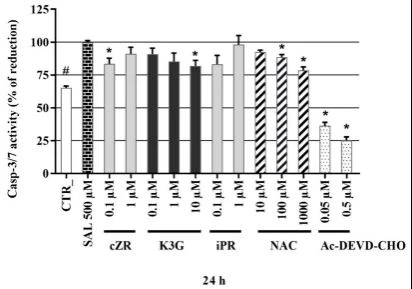
Figur 4. Caspase-3/7-aktivitet i den SAL-inducerade modellen av PD. Tredubblas på minst fyra oberoende dagar. * P jämfört med fordonet med 500 uM SAL, # P jämfört med fordonet utan 500 uM SAL.
2.7. Identifiering av neuroprotektiv cytokininaktivitet i den glutamatinducerade celldödsmodellen
Eftersom SH-SY5Y-celler inte uttrycker alla NMDA-receptorsubenheter [61], är den mest sannolika mekanismen för glutamat (Glu) toxicitet blockering av cystin/glutamat Xc-antiporter med massiv induktion av oxidativ stress [62]. Tidigare författare har redan visat ett samband mellan glutamatinducerad celldöd och nekroptos i SH-SY5Y-celler [63] och vikten av kaspas-3-aktivering i glutamatinducerad toxicitet för dem [62,64]. Flera studier har också visat förekomsten av järndriven celldöd (ferroptos) efter glutamatförgiftning [62,65,66], och indikerade förekomsten av tre typer av celldöd (nekroptos, apoptos och ferroptos) efter blockad av Xc. -antiportersystem. För att kunna slutföra en omfattande utvärdering avneuroprotektivapotentialen hos de testadecytokininer, inkluderades det glutamatinducerade celldödsanalyssystemet i en analytisk panel med det kändaneuroprotektivajärnkelator deferoxamin (DFO) och hämmare av nekroptos nekrostatin-1 (NEC-1) [67] som positiva kontroller. Här differentierades SH-SY5Y-celler i 48 timmar, behandlades sedan med 160 mM Glu eller i sambehandling därav med olikacytokininkoncentrationer ({{0}}.1–10 uM) i 24 timmar och färgades med PI. I denna modell var effekten av Glu på celldöd 100 procent PI-signal, så minskningen av celldöd av testföreningarna utvärderades. Glu inducerade nästan en 4-faldig ökning av celldöd jämfört med friska SH-SY5Y-kontroller (26,1 ± 0,42 procent). Screening av positiva kontroller ochcytokininervisade att både positiva kontroller NEC-1 (50 uM, 76,6 ± 2,51 procent) och DFO (10 uM, 84,2 ± 4,54 procent) minskade celldöden inducerad av glutamat. Som visas i figur 5A, från panelen påcytokininer, bara trecytokininerkunde skyddanervcell-liknande SH-SY5Y-celler på ett liknande sätt som positiva kontroller. Den mest aktivacytokininervar trans-zeatin (tZ) (0,1 uM, 79,5 ± 2,91 procent; 1 uM, 81,3 ± 2,77 procent) och cis-zeatin (CZ) (0,1 uM, 82,1 ± 3,29 procent ; 1 uM, {{20}},2 ± 2,89 procent ) och kinetin (K) (1 uM, 88,0 ± 3,76 procent ; 10 uM, 79,9 ± 3,44 procent). För att bekräfta deras lovande aktivitet användes en ortogonal analys för att närmare belysa CKs biologiska effekter i denna modell: En laktatdehydrogenas (LDH)-frisättningsanalys [68], som också visade ett dramatiskt (4-faldigt) ökad toxicitet efter Glu-behandling. Intressant nog tillät bestämningen av LDH-frisättning oss att skilja mellan aktiviteterna hos CK och de positiva kontrollerna (NEC-1 och DFO). CKs hade måttlig men signifikant skyddande aktivitet (tZ minskade dödstalen till 91,9 ± 1,40 procent vid 0,1 uM; cZ minskade dem till 92,3 ± 1,15 procent vid 0,1 uM och 91,7 procent ± 1,56 procent vid 1 uM; KZ minskade dem till 92,3 ± 1,15 procent vid 0,1 uM och 91,7 procent ± 1,56 procent vid 1 uM; 1,06 procent vid 1 uM). De positiva kontrollerna NEC-1 och DFO hade starkare skyddande effekter men var effektiva vid mycket högre koncentrationer (reducerade frekvenserna till 76,9 ± 2,94 procent och 81,6 ± 3,74 procent vid 50 respektive 10 uM) (Figur 5B). LDH-analysen validerade indikationerna som erhölls med PI-färgning och de observerade effekterna av de positiva kontrollerna överensstämde med publicerade data [69,70]. Fynd angående effekter av K i den Glu-inducerade celldödsmodellen i HT22-celler [18] och våra observationer av effekter av representativa CK som tZ, cZ och K visar att CK är lovande kandidater för att behandla neurodegenerativa sjukdomar associerade med oxidativ stress [ 71]. Slutligen föredrogs tZ och cZ eftersom de var effektiva vid lägre koncentrationer och valdes ut tillsammans med K för ytterligare studier av deras effekter på nivåer av oxidativ stress och kaspas-3,7-aktivering.
cistancherecensionerpå effekterna avneuroskydd
2.8. Effekter av cytokininer på glu-inducerad oxidativ stress i SH-SY5Y-celler
Till skillnad från den tidigare modellen kan Glu inducera oxidativ stress i SH-SY5Y-celler på olika vägar. En är baserad på blockering av Cystin/glutamat (Xc-) antiporter, vilket leder till glutation (GSH) utarmning och negativa effekter på superoxiddismutas (SOD) aktivitet [62]. Glu-medierad celldöd involverar också förmodat Rac-NADPH-oxidas-driven ROS-bildning (särskilt superoxidradikal) i SH-SY5Y-celler [72]. Dessa fynd indikerar att den primära orsaken till celldöd i den Glu-inducerade modellen är OS. Inom modellen,nervcell-liknande celler sambehandlades med Glu och testade föreningar, färgades med DHE och observerades med fluorescensmikroskopi. Som kan ses i figur 6A observerades en dramatisk ökning av röd DHE-fluorescens i Glu-behandlade celler, vilket förbättrades av de positiva kontrollsubstanserna och testade CK. Baserat på mikroskopiobservationen utfördes kvantifieringen av superoxidnivåer i Glu-inducerade celler på ett liknande sätt, med DHE-analysen, som de i SAL-inducerade celler. Resultaten normaliserades med avseende på nivåer inducerade av enbart Glu (inställd på 100 procent), vilket orsakade en dramatisk, nästan 3-faldig ökning av superoxidnivåer inom bara 4 timmar inervcell-liknande SH-SY5Y-celler i förhållande till nivåer i friska kontrollceller (CTR: 33,79 ± 1,45 procent). Som visas i figur 6B minskade CK:er såsom tZ, cZ och K signifikant superoxidnivån i glu-berusade celler: 0.1 uM tZ, 0.1 uM cZ, 1 uM och 10 uM K reducerade den till 81,0 ± 4,03, 80,6 ± 3,89, 81,8 ± 3,39 och 83,8 ± 2,32 procent av nivåerna i celler behandlade med enbart Glu. Dessa nivåer är jämförbara med de som erhålls med nekroptoshämmaren NEC-1 (80,5 ± 3,19 procent vid 5 uM och 80,4 ± 2,70 procent vid 50 uM) och järnkelator DFO (80,2 ± 3,80 procent vid 10 uM). Resultaten som erhållits med den Glu-inducerade celldödsmodellen, särskilt effekterna av positiva kontroller, överensstämmer med tidigare rapporter [70,73]. Tidigare bevis för att CK har OS-reducerande effekter i Glu-inducerade eller liknande modeller är begränsade till en demonstration av att K är ett potent OS-reducerande medel (vid ungefär 23 uM) i den HT22-cellbaserade Glu-inducerade celldödsmodellen [18 ]. Vi fann att K hade en OS-reducerande effekt vid lägre koncentrationer (1–10 uM) i våra SH-SY5Y-celler. Dessutom har fördelaktiga långsiktiga effekter av tZ på mänskliga fibroblaster, inklusive väteperoxidnedbrytande aktivitet, observerats [15], vilket tyder på att tZ och cZ kan ha indirekta OS-reducerande effekter i Glu-inducerade celldödsmodeller. Dessutom påpekade andra rapporter sambanden mellan CKs-medierad OS-reducerande effekt och skyddande aktivitet [22,74-76]. Sammantaget visade tZ, cZ och K förvånansvärt starka OS-reducerande effekter, jämförbara med positiva kontroller, trots olika styrkor totalt settneuroprotektivaeffekt.
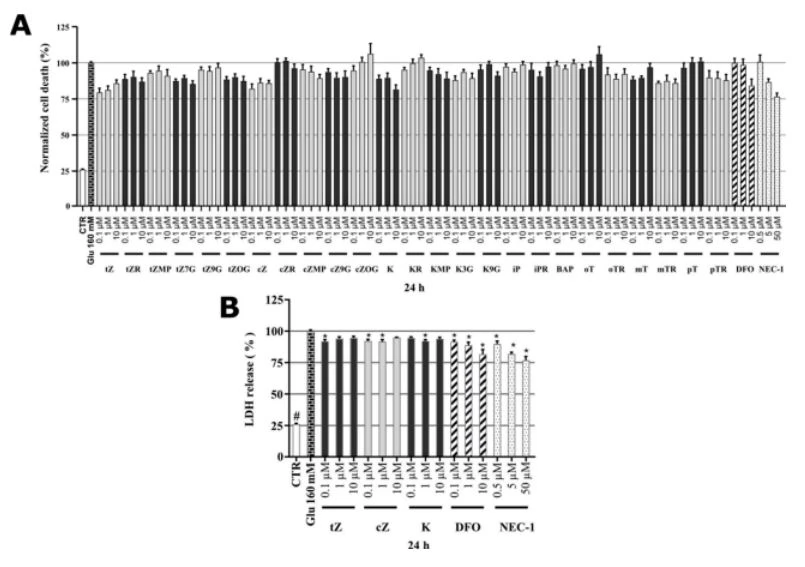
Figur 5. (A) Dödsfrekvens förnervcell-liknande SH-SY5Y-celler i glutamat (Glu)-inducerad modell av celldöd; (B) Glu-inducerad toxicitet (LDH-frisättning) avnervcell-liknande SH-SY5Y-celler. Tredubblas på minst tre oberoende dagar.* P jämfört med vehikeln med 160 uM Glu, # P jämfört med vehikeln utan 160 uM Glu.

Figur 6. (A) Glu-inducerad oxidativ stress (OS) och OS-reducerande aktivitet av indikerade föreningar hos människornervcell-liknande SH-SY5Y-celler visualiserade med fluorescensmikroskopi efter dihydroetidium (DHE)-märkning. Staplar=50 um. Bilder visarnervcell-liknande SH-SY5Y-celler behandlade med DMSO (kontroll), 160 mM glutamat (Glu) enbart och tillsammans med: 10 uM deferoxamin (plus DFO), 50 uM nekrostatin{{6} } (plus NEC-1), 0,1 uM tZ (plus tZ) och 0,1 uM cZ (plus cZ) i 4 timmar, färgade sedan med DHE. (B) Glu-inducerad superoxidradikalbildning inervcell-liknande SH-SY5Y-celler efter 4 timmar. Grafen visar kvantifieringen av DHE-färgade celler med Infinite M200 Pro mikroplattläsare (Tecan, Österrike). Tredubblar på fem oberoende dagar.
* P jämfört med vehikeln med 160 uM Glu, # P jämfört med vehikeln utan 160 uM Glu.
2.9. Effekter av cytokininer på kaspas-3/7-aktivitet i den glu-inducerade celldödsmodellen
Glu har liknande toxiska effekter på SH-SY5Y-celler som tidigare rapporterade effekter på HT22-celler associerade med Xc-antiporter-blockering. Således är icke-apoptotiska celldödsmekanismer (ferroptos, nekroptos, etc.) involverade i båda fallen [62] även om uttryck av kaspas-3 och i viss mån NMDA-subenheten av NR1 kan förekomma starkare i SH -SY5Y-celler [61]. Därför kan de slutliga stadierna av celldöd i de två cellinjerna skilja sig åt. En bidragande roll av kaspas-3-aktivitet har observerats i många studier i den Glu-inducerade modellen för celldöd hos SH-SY5Y-celler [62,77–79]. I denna analys,nervcell-liknande SH-SY5Y-celler behandlades här med 160 mM Glu, vilket leder till förhöjd aktivitet av kaspas-3/7. I försök att klargöra rollen av apoptos i Glu-inducerad död av SH-SY5Y-celler, applicerades en specifik kaspas-3/7-hämmare, Ac-DEVD-CHO, och visade sig ha en starkt hämmande effekt: Vid 50 nM minskade kaspas-3,7-aktiviteten till 23,70 ± 1,01 procent av nivån i behandlade celler
med Glu enbart och vid 0,5 uM blockerade det nästan helt aktiviteten (reducerade den till en normaliserad nivå på bara 7,22 ± 1,05 procent; jämförbar med nivån som observerades i friska celler:
7,8 ± 0,39 procent ), som visas i figur 7. Tillämpning av positiva kontroller resulterade i en gradvis dosberoende minskning av kaspas-3,7-aktivitet. Intressant nog hade NEC-1 en liten effekt med maximal effekt vid 50 uM och DFO hade mer robust hämmande aktivitet vid 10 uM (reducerade aktiviteten till 80,5 ± 1,85 och 75,8 ± 3 .00 procent respektive). Å andra sidan uppnåddes endast små, men signifikanta effekter på casp-3,7 av tZ vid 1 uM (89,5 ± 2,50 procent), cZ vid 0,1 uM (87,4 ± 1,62 procent) och K vid 1 uM ( 91,0 ± 2,06 procent). Sammantaget visar resultaten att båda positiva kontrollerna hade starkare aktivitetsminskande aktivitet av kaspas-3/7 än de testade CK:erna, men CK:erna hade effekter vid mycket lägre koncentrationer. Sammantaget indikerar resultaten att modulering av kaspas-3/7-aktivitet spelar en nyckelroll i den potentaneuroprotektivaaktivitet av medel som DFO [58] i den Glu-inducerade modellen för celldöd [79,80]. Men som visas i det här avsnittet hade NEC-1 ocksåneuroprotektivaaktivitet, vilket tyder på att andra typer av celldöd kan vara involverade i Glu-inducerad död av neuronliknande SH-SY5Y-celler [63,67,81]. Indikationer på att kaspasoberoende mekanismer är involverade i Glu-inducerad celldöd har också erhållits i analyser av effekter av NEC-1 [70], DFO [69] och K [18] på HT22-celler.
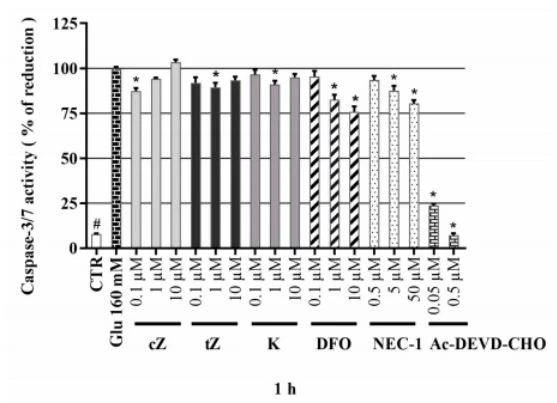
Figur 7. Caspas-3/7-aktivitet i Glu-modell av oxidativ skada avnervcell-liknande SH-SY5Y-celler. Tredubblas på minst fyra oberoende dagar. * P jämfört med vehikeln med 160 uM Glu, # P jämfört med vehikeln utan 160 uM Glu.
3. Slutsatser
Sammanfattningsvis visade vår studie att CK och deras metaboliter harneuroprotektivaaktiviteter i den SAL-inducerade modellen avParkinsons sjukdomoch Glu-inducerad oxidativ skada i humant differentierad SH-SY5Yneuronalceller. K3G, cZR och iPR visade sig ha biologiskt signifikantaneuroprotektivaaktiviteter. Dessutom var de aktiva CK:erna effektiva vid lägre (submikromolära och mikromolära) koncentrationer än den positiva kontrollsubstansen NAC. K3G, cZR och iPR hade också positiva effekter på livsduglighet, cytotoxicitet, oxidativ stress och kaspas-3,7-aktivitet (förutom iPR). De ortogonala demonstrationerna indikerar starkt att antioxidativ stressaktivitet spelar en nyckelroll i CKs skyddande effekter i den SAL-inducerade celldödsmodellen. Endast tre metaboliter i den testade panelen av CKs (tZ, cZ och K) skyddadenervcell-liknande SH-SY5Y-celler i den Glu-inducerade modellen av oxidativ skada på ett liknande sätt som järnkelatorn NEC1 och nekroptoshämmaren DFO. För att bekräfta deras lovande aktivitet testade vi deras effekter i ortogonal laktatdehydrogenas (LDH)-frisättningsanalys. CKs hade måttlig men signifikant skyddande aktivitet. Detta var svagare än motsvarande aktiviteter för kontrollämnena, men trots skillnaderna i moduleringen avneuronalhälsa, alla tre testade CK stimulerade kraftiga minskningar av superoxidradikalbildning, i likhet med de positiva kontrollsubstanserna. CKs hade också jämförbara effekter på Glu-inducerad oxidativ stress i SH-SY5Y-celler som NEC1 och DFO, men dessa föreningar hade starkare hämmande effekter på kaspas-3/7 aktivitet än CKs. Eftersom Glu-inducerad celldöd inte är beroende av en kaspasberoende väg, vilket visats i studier av effekter av DFO och NEC-1 på HT-22-celler [70], kan CK tydligen modulera både kaspas- beroende och -oberoende celldöd genom att minska oxidativ stress [18,82]. I pågående studier, den detaljerade verkningsmekanismen för CK och/eller deras mitokondriella effekter påneuronaleller astrocytceller kommer att undersökas.
cistancheerfarenhetförPDochminne
4. Material och metoder
4.1. Kemikalier och reagenser
Cytokininstandarder erhölls från OlChemIm (Olomouc, Tjeckien). Calcein AM (1 mg/ml lösning), och LDH-frisättningskit och ett Neurite-utväxtkit köptes från ThermoFisher. Propidiumjodid, dihydroetidium, komponenter av kaspas- 3/7 analysbuffert, DMEM/F12 1:1 medium, fetalt bovint serum, trypsin, ATRA, salsolinolhydrobromid, glutamatmononatriumsalt, deferoxamin, N-acetylcystein Ac-DEVD-CHO och DMSO för cellkulturer köptes från Sigma Aldrich (Merck). Ac-DEVD-AMC-substratet levererades av Enzo Life Science.
4.2. ORAC Radical Scavenging Activity Assays
Föreningars förmåga att avlägsna fria radikaler in vitro bestämdes med Oxygen Radical Absorbance Capacity (ORAC)-analysen. Kortfattat sattes fluorescein (100 uL, 500 mM) och 25 uL av den testade föreningslösningen till en 96-brunnsmikroplatta förinkuberad vid 37oC. Därefter 25 uL av 250 mM 2,2<-azobis(2-amidino-propane)dihydrochloride (aaph)="" was="" quickly="" added,="" the="" microplate="" was="" shaken="" for="" 5="" s="" and="" red="" fluorescence="" (with="" 485="" and="" 510="" nm="" excitation="" and="" emission="" wavelengths,="" respectively)="" was="" measured="" every="" 3="" min="" over="" 90="" min="" using="" an="" infinite="" 200="" microplate="" reader="" (tecan,="" männedorf,="" switzerland).="" nauc="" (net="" area="" under="" curve)="" values="" were="" used="" to="" express="" antioxidant="" activities="" relative="" to="" that="" of="" trolox="" (a="" synthetic="" hydrophilic="" analog="" of="" α-tocopherol,="" vitamin="" e).="" substances="" with="" orac="" values="" greater="" than="" zero="" are="" deemed="" to="" actively="" trap="" free="">
4.3. SH-SY5Y cellkultur
Den humana neuroblastomcellinjen SH-SY5Y köpt från ATCC (American Type Culture Collection, Manassas, VA, USA) odlades i Dulbeccos modifierade Eagle's Medium och Ham's F12 Nutrient Mixture (DMEM: F-12, 1:1 ), kompletterat med 10 procent fetalt bovint serum (FBS) och 1 procent penicillin och streptomycin vid 37 oC i en fuktad 5 procent CO2-atmosfär. Celler passerades upp till 20 gånger och media byttes två eller tre gånger i veckan. Celldensiteten ställdes in som lämpligt för den planerade analysen (5000, 7000, 10 000 eller 20 000 celler per brunn) i 96-flerbrunnsplattor i 100 uL totala volymer medium för varje experimentera. Dagen efter sådd tillsattes ATRA i 1 procent FBS DMEM/F12-medium till cellerna till en slutlig koncentration av 10 uM, och inkubationen fortsatte i ytterligare 48 timmar för att inducera differentiering, möjliggöra bildandet av längre neuriter och minska spridning.
4.4. Mikroskopi
Mikrofotografier avnervcell-liknande SH-SY5Y-celler erhölls med ett DM IL LED-fluorescensmikroskop (Leica Microsystems, Mannheim, Tyskland) med ett lämpligt excitationsfilter för analysen, eller en ljusfältsuppsättning med en DP73 högpresterande digitalkamera (Olympus, Tokyo, Japan ). Eftersom signal-brusförhållandet för färgning var måttligt justerades kontrasten något i ImageJ-programvaran (Fiji) utan att den resulterande observationen påverkades. Originalbilder ingår i tilläggsmaterialet.
4.5. Cellmembranfärgning (Neurite Outgrowth-kit, Invitrogen™)
Nervcell-liknande SH-SY5Y-celler (5000 celler per brunn) erhållna genom 48 timmars differentieringsproceduren färgades med ett Neurite-utväxtkit (Invitrogen™) enligt tillverkarens rekommendationer med mindre modifieringar. Cellerna tvättades med PBS, märktes med en lösning av membranfärgningsfärgen som levererades med kitet (enligt protokollet för 96 flerbrunnsplattor) i PBS i 20 minuter vid 37 oC, tvättades igen med PBS och tittades under ett fluorescensmikroskop ( med 533 och 585 nm excitations- respektive emissionsvåglängder).
4.6. Cellbehandling
Efter differentieringsproceduren byttes differentieringsmediet till 1 procent DMEM/F12-medium kompletterat med testföreningar i koncentrationer av 0.1, 1 och 10 uM (med 7000 celler per brunn för cytotoxicitetstester), eller tillsammans med toxinet SAL vid 500 uM (med 7000–10 000 celler per brunn) eller 160 mM Glu (med 20 000 celler per brunn) under en lämplig varaktighet för analystypen (viabilitet, celldöd, etc.). Kontrollceller behandlades med ett medium innehållande 0,0,1 procent DMSO.
4.7. Cellviabilitet och celldöd
Viabiliteten avnervcell-liknande SH-SY5Y-celler som växer i 96-brunnars mikroplattor (med ca. 7000 celler per brunn) efter 24 timmars behandlingar utvärderades med Calcein AM-analysen med mindre modifieringar [31]. Calcein AM-lösningen i PBS som användes hade 0,75 uM koncentration och inkubationstiden sattes till 50 min. Antalet levande celler i varje brunn bestämdes med hjälp av en Infinite M200 Pro mikroplattläsare (Tecan, Österrike), med 495 respektive 517 nm excitations- respektive emissionsvåglängder.
Celldöd avnervcell-liknande celler (SAL-modell: 10,000 celler per brunn; Glu-modell: 20,000 celler per brunn) bestämdes genom PI-analys som rapporterats av Stone et al. 2003 med liten modifiering [83]. Kortfattat, mediet för den SAL-inducerade modellen aspirerades och byttes till en 1 ug/ml lösning av PI i PBS, men celler som utsatts för Glu-induktion har svagare vidhäftning så en 1 mg/ml lösning av PI i PBS sattes till ge en slutkoncentration på 1 ug/ml. I båda fallen inkuberades celler i ytterligare 15–25 minuter vid rumstemperatur, sedan mättes PI-fluorescens med en Infinite M200 Pro-läsare (Tecan, Grödig, Österrike) med 535 respektive 617 excitations- och emissionsvåglängder. Den resulterande PI-fluorescensen erhållen med enbart toxiner sattes som 100 procent celldöd.
4.8. Mätning av oxidativ stress med dihydroetidium (DHE) analys
Celler differentierades och behandlades enligt beskrivningen i föregående avsnitt för SAL-induktion (10,000 celler per brunn, 24 timmar eller Glu-induktion (20,000 celler per brunn, 4 timmar). Efter behandlingarna centrifugerades cellerna vid 500 xg i 330 s, sedan ersattes odlingsmediet (efter aspiration) med 10 uM DHE-lösning i PBS. 96-flerbrunnsplattor med celler inkuberades i mörker under 30 minuter i rummet temperatur, sedan mättes DHE-fluorescensen med en Infinite M200 Pro-mikroplattläsare (Tecan, Grödig, Österrike) med 500 respektive 580 nm excitations- respektive emissionsvåglängder. Den resulterande DHE-fluorescensen erhölls med enbart SAL- eller Glukosmetalprocent. Illustrativa fluorescensmikrofotografier av DHE-färgade celler erhölls efter DHE-mätning med mikroplattläsaren.
Cistanche-växten har en mycket bra neuroprotektiv effekt
4.9. Mätning av Caspase-3/7-aktivitet
Enstegs kaspas-3/7-analyser utfördes enligt en tidigare publicerad procedur [84]. För kulturer som utsatts för SAL-induktion och Glu-induktion, inkuberades reaktionsblandningarna (kaspas-3,7-buffert och komponenter med celler i 96-flerbrunnsplattor) i 2 timmar och 3 timmar vid 37 oC, respektive. Caspase-3/7-aktivitet mättes sedan med en Infinite M200 Pro-mikroplattläsare (Tecan, Österrike) med 346 respektive 438 nm excitations- respektive emissionsvåglängder.
4.10. Statistisk analys
Experiment utfördes i tre exemplar och upprepades på tre till fem (n {{0}}}–5) oberoende dagar. Alla data uttrycks som medelvärde ± SEM. Värden för alla uppmätta variabler uttrycks som medelvärden ± SEM, som beräknades med Prism 8.4.3 (GraphPad Software, La Jolla, CA, USA), som också användes för att generera siffrorna. Den statistiska analysen utfördes av mjukvarupaketet PAST (ver. 1.97) [85]. För differentieringsexperimentet användes Student t-test. Resten av experimenten utvärderades med icke-parametriskt Kruskal-Wallis-test med Mann-Whitney post hoc-test med sekventiell Bonferroni-korrigering. Ett värde på p < 0,05="" ansågs="">
Kompletterande material: Originalbilder finns tillgängliga online.
Författarbidrag: Bidrag från författarna var följande: Undersökning, metodik, validering, dataanalys, GG, CWD och JG; skrivning—ursprungligt utkast förberedelse GG, CWD och MS; datakurering, finansieringsanskaffning, handledning, skrivande – granskning och redigering, CWD, MS och PK Alla författare har läst och samtyckt till den publicerade versionen av manuskriptet.
Finansiering: Detta arbete stöddes finansiellt delvis av anslag från Internal Grant Agency vid Palacky University i Olomouc, Tjeckien (IGA{{0}}PrF_2020_021), den tjeckiska Grant Agency ({{ 2}}S), och Europeiska regionala utvecklingsfonden – Projekt ENOCH (nr CZ.02.1.01/0.0/0.0/ 16_019/ 0000868) och ett studentstipendium från Palacky University's Endowment Fund.
Utlåtande av institutionell granskningsnämnd: Ej tillämpligt.
Informerat samtycke: Ej tillämpligt.
Datatillgänglighetsförklaring: Data finns i artikeln eller tilläggsmaterialet.
Tack: Författarna tackar Dita Jordovd, Jana Hrubešovd och Lucie Koplikovd för utmärkt teknisk assistans. Dessutom tackar författarna Sees-editing Ltd., Storbritannien för den engelska redigeringen av manuskriptet.
Intressekonflikter: Författarna förklarar att det inte finns några intressekonflikter.
Provtillgänglighet: Prover av föreningarna är inte tillgängliga från författarna.


