Signalvägar och nedströmseffektorer av värds medfödd immunitet i växter Del 1
Jul 03, 2023
Abstrakt:
Fytopatogener, såsom biotrofer, hemibiotrofer och nekrotrofer, utgör allvarlig stress på utvecklingen av deras värdväxter, vilket äventyrar deras avkastning. Växter är i konstant interaktion med sådana fytopatogener och är därför sårbara för deras attack. För att motverka dessa attacker måste växter utveckla immunitet mot dem. Följaktligen har växter utvecklat strategier för att känna igen och motverka patogenes genom mönsterutlöst immunitet (PTI) och effektorutlöst immunitet (ETI). Patogen perception och övervakning förmedlas genom receptorproteiner som utlöser signaltransduktion, initierat i cytoplasman eller vid plasmamembranets (PM) ytor. Växtvärdar har mikrobassocierade molekylära mönster (P/MAMPs), som utlöser en komplex uppsättning mekanismer genom mönsterigenkänningsreceptorerna (PRR) och resistensgener (R).
Semi-biotrofa bakterier är ett näringsämne som kan förbättra människans immunitet. Det kan förbättra människokroppens immunförsvar genom att förbättra balansen i tarmfloran. Immunsystemet är kroppens försvarslinje, som känner igen och förstör främmande inkräktare. Men om det finns ett problem med immunsystemet, blir kroppen sårbar för sjukdomar. Därför är det mycket viktigt att hålla immunförsvaret stabilt och starkt.
Semibiotrofa bakterier kan hjälpa till att förbättra immunsystemets funktion, öka antalet och mångfalden av nyttiga bakterier i tarmkanalen och förbättra människokroppens immunförsvar. Det stärker kroppens immunförsvar och minskar risken att drabbas av sjukdomar. Samtidigt kan halvlevande näringsbakterier också lindra matsmältningsproblem som mag-tarmbesvär, och ytterligare förbättra kroppens immunitet.
Semi-biotrofa bakterier kan överleva i människokroppen under en tid, etablera en vänskaplig relation med de nyttiga bakterierna i tarmen och producera nyttiga metaboliter för att främja balansen och funktionen hos tarmfloran. Denna process kan öka antalet och mångfalden av nyttiga bakterier i tarmen, och kroppens försvar mot sjukdomar kan också förbättras i enlighet därmed.
Därför är semi-biotrofa bakterier ett mycket fördelaktigt näringsämne som kan bidra till att förbättra mänsklig immunitet, minska risken för infektion, inflammation och andra sjukdomar och är mycket fördelaktiga för människors hälsa. Genom att korrekt inta semi-biotrofa bakterier kan vi förbättra vår immunitet, upprätthålla ett hälsosamt tillstånd i kroppen och njuta av ett bättre liv. Ur denna synvinkel måste vi förbättra vår immunitet. Cistanche kan avsevärt förbättra immuniteten. Polysackariderna i köttet kan reglera immunsvaret hos det mänskliga immunsystemet, förbättra immuncellers stressförmåga och förbättra effekten av sterilisering av immunceller.
Klicka cistanche deserticola tillägg
Dessa interaktioner leder till stimulering av cytoplasmatiska kinaser av många fosforylerande proteiner som också kan vara transkriptionsfaktorer. Dessutom är fytohormoner, såsom salicylsyra, jasmonsyra och eten, också effektiva för att utlösa försvarssvar. Stängning av stomata, begränsning av överföringen av näringsämnen genom apoplastiska och symplastiska rörelser, produktion av antimikrobiella föreningar och programmerad celldöd (PCD) är några av de primära försvarsrelaterade mekanismerna. Den aktuella artikeln belyser de molekylära processer som är involverade i växtens medfödda immunitet (PII) och diskuterar de senaste och mest troliga vetenskapliga interventionerna som kan vara användbara för att förstärka PII.
Nyckelord:
växtimmunitet; försvarsvägar; signaleringsmekanismer; PTI; ETI; fytohormoner.
1. Introduktion
Interaktionen mellan växterna och mikroberna föregår historien, och de möter varandra ständigt för olika ändamål, såsom i form av biokontrollmedel [1], arbuskulär mykorrhiza [2,3] och lika många andra ömsesidiga förmånstagare eller patogener sedan dess. deras ursprung. Flera av dessa mikroorganismer orsakar olika sjukdomar i olika växtväxter och skapar förödelse och enorma ekonomiska förluster genom att äventyra grödans produktivitet och skörd [4,5]. Detta område av växtmikrober och deras interaktioner med växter har varit ett intressant framväxande forskningsområde för närvarande.
Samtidigt ger denna information användbara insikter om uppkomsten av sjukdomar, förekomsten av genetiska förändringar och underliggande försvarsmekanismer i både växter och mikrober och deras effektiva hanteringsmetoder [4,5]. Den aktuella granskningen ger en översikt över det befintliga kunskapsläget inom området för växt medfödd immunitet (PII) och uppdateringar av den senaste informationen som har lagts till de olika aspekterna av PII som för närvarande diskuteras.
Vidare diskuteras vikten av signalvägar och deras nedströms effektorer associerade med PII i ljuset av nyare forskning som är tänkt att utveckla vyer för nya forskningsdesigner för effektiv hantering av växtsjukdomar lämpade för kommersiellt utnyttjande.
En attack av mikrobiella patogener, skadedjur och vävnads- och cellskador i växter detekteras i allmänhet av cellytereceptorer genom det evolutionärt bevarade medfödda immunsystemet.

Enligt Jones och Dangi [6] svarar dessa mikrobiella patogener som kan försämra växttillväxt och reproduktion på infektion med hjälp av ett tvågrenat medfött immunsystem som för det första känner igen och svarar på molekyler som är gemensamma för många klasser av mikrober, inklusive icke-patogener och för det andra patogena virulensfaktorer, antingen direkt eller genom deras effekter på värdmål.
Växtimmunsystemet (PII) och de associerade patogenmolekylerna ger enorma insikter om molekylär igenkänning, cellbiologi och evolution över hela det biologiska riket. Deras detaljer är för närvarande markerade i följande avsnitt.
2. Mönsterutlöst immunitet (PTI)
Mönsterutlöst immunitet (PTI) är det första lagret i immunsvaret. I denna process känner mönsterigenkänningsreceptorerna igen de konserverade molekylära mönstren som lipopolysackarider, peptidoglykaner, kitin, flagellin, EF-Tu, DNA och ergosterol kända som patogenassocierade molekylära mönster (PAMPs) eller mikrobassocierade molekylära mönster (MAMPs), som hjälper till med hydrolys och aktivering av signalvägar inklusive produktion av reaktiva syrearter (ROS), MAP-kinasaktivering och transkriptionell induktion av patogen-responsiva gener.
Flera utmärkta recensioner av MAMPs finns tillgängliga [7–10]. De mikrobiella och patogenassocierade molekylmönstren är långsamma processer eftersom de utvecklas under en avsevärd period [6]. En nyckelaspekt av definitionen av PAMP och MAMP är att de är konserverade och spridda inom en klass av mikrober [11]. Ibland, som ett resultat av patogenangrepp, inser växterna att deras peptider kontinuerligt syntetiseras.
Dessa släpps ut i det extracellulära utrymmet, inklusive växtapoplast, från sin normala plats på grund av skada (trauma), och dessa molekyler kallas skadeassocierade molekylära mönster (DAMPs) [12–14]. MAMPs härrör från mikroorganismer, medan DAMPs är värdcellshärledda och både initierar och vidmakthåller medfödda immunsvar [14]. Av DAMP:erna är de största och bäst karakteriserade polypeptider/peptider som produceras från större prekursorproteiner som inkluderar tre familjer som upptäcktes av Ryan och hans kollegor under deras studie för att identifiera systemin - en term "används för att beskriva polypeptidförsvarssignaler som produceras av växt som svar på fysisk skada och inducerar försvarsgener, antingen lokalt eller systemiskt [15].
En polypeptid med 18 aminosyror (aa) isolerades från en tomatplanta som visade sig inducera syntesen av sår-inducerbara proteinasinhibitorproteiner [16]. Lokaliserat i vaskulära parenkymceller, genereras tomatsystemet genom sårinducerad bearbetning av ett 200 aa prohormon pro systemin och inducerar de närliggande följeslagarcellerna och siktelementen i kärlknippet att syntetisera jasmonsyra (JA), vilket aktiverar uttrycket av proteinas inhibitorgener [17]. En tredje familj av peptidbaserade DAMPs, upptäckt i Arabidopsis, är 23 aa plant elicitor peptider (Peps) som härrör från en 92 aa prekursor [18].
De identifierade receptorerna är kända som AtPeps, som inducerar en mängd olika medfödda immunsvar och ökad resistens, och en form av prekursor ProPep3 PROPEP3 visade sig nyligen släppas ut i det extracellulära utrymmet vid infektion av Arabidopsis med hemibiotrofiska Pseudomonas syringae [19]. En majsortolog, ZmPep1, identifierades därefter och visade sig öka resistensen mot mikrobiella patogener [20].
Extracellulär ATP (eATP) omfattar ytterligare en klass av växt-DAMPs som finns i både växter och djur. Genom att dechiffrera plasmamembranlokaliserade receptorer tillskrevs eATP till signalfunktioner.
Baserat på observationerna av dorn1 [20] mutanta och sår-inducerbara gener, har eATPs betecknats som växt DAMP [21]. Dessutom har ATP visat sig inducera typiska medfödda immunsvar som inkluderar cytosoliskt Ca2 plus inflöde, MAPK-aktivering och induktion av några tätt associerade gener som är involverade i biosyntesen av JA och eten [21]. Det är dock ännu oklart om det bidrar till resistens mot patogener.
En konstitutiv basal immunitet som finns i växter utlöses av patogenerna, vilket ger fullständig eller ofullständig resistens mot dem mot dessa fytopatogener [14]. Växterna har två skyddande fysiska barriärer som kallas nagelbandet och cellväggen, och dessutom fungerar produktionen av olika antimikrobiella föreningar som en kontrollåtgärd. Även om nagelbandet skyddar mot fytopatogener och skadedjur, kan vissa svampar penetrera, medan cellväggen hjälper till att skydda mot olika abiotiska och biotiska påfrestningar [22].
Det finns många sätt genom vilka fytopatogenerna kommer in i växtsystemet och orsakar skador på dem, till exempel genom naturliga öppningar som stomata, linser, hydatoder och nektartoder, eller genom sår och skärsår som uppstått som ett resultat av växtätande, regn/stormar eller mänskliga ingrepp [22]. Därför rekryterar växterna många cellytor och intracellulära immunreceptorer för att uppfatta en mängd olika immunogena signaler associerade med patogeninfektion och följt av aktivering av defensiva signalkaskader [23].
2.1. Bakterie
Flagellin är den mest studerade proteinsubenheten, som utgör det bakteriella flagellumet och dess receptor är en leucinrik repetition som beter sig som kinaser (LRR-RLKs) FLAGELLIN SENSING 2 i Arabidopsis. N-terminalen av flagellinet innehåller en 22-aminosyrakonserverad region, som initierar och framkallar flagellinavkänningssvar därpå [24]. Nyligen har det rapporterats att glykosidas-galaktosidas 1 (BGAL1) verkar på det glykosylerade flagellinet som har en terminal modifierad viosamin, eftersom flagellin normalt glykosyleras och verkar uppströms om proteaser i växtapoplasten, som är platsen för att invadera bakteriers frisatta immunogena peptider. [25]. Därför producerar bakteriestammar som Pseudomonas syringae oigenkännliga glykaner som kallas BGAL 1-okänsliga, som överträffar detektionen av FLS2 [24–27].
På liknande sätt detekterar en annan LRR-RLK, bakteriell förlängningsfaktor Tu (EF-Tu)-receptor (EFR) 18-aminosyraregionen i EF-Tu och initierar också signaleringskaskaden. Vid igenkänning heterodimeriserar de omedelbart med LRR-RLK-familjens coreceptor BAK1 [5,28]. Snabb fosforylering av det receptorliknande cytoplasmatiska kinaset (RLCK) BIK1 och dess homolog PBL1, som är konstitutivt associerad med FLS2/EFR, och BAK1 sker och frisätts därigenom från receptorkomplexen vid MAMP-uppfattning [28,29].

Denna BIK1 fosforylerar sedan direkt plasmamembranet NADPH oxidas RBOHD (respiratory burst oxidase homolog protein D), vilket resulterar i produktion av reaktiva syrearter (ROS) och hjälper till med stomatal immunitet som tillsammans med kalciumsignalförmedlad RBOHD-reglering. Denna produktion av ROS är avgörande för etableringen av ett framgångsrikt immunsvar mot patogener. RBOHD regleras av ubiquitination och C-terminal fosforylering. Det rapporterades nyligen att när AVRPPHB Susceptible1 (PBS1)-liknande kinas 13 (PBL13) receptorliknande cytoplasmatisk kinas fosforylerar vid C-terminalen av RBOHD vid positionerna S862 och T912, ger det stabilitet och påverkar dess aktivitet [ 5,28,30,31].
Effektorerna av bakteriella patogener riktar sig i allmänhet mot växternas kinaser, nämligen RLK och RLCK. Till exempel, typ III effektorer av Pseudomonas syringae inklusive AvrPto, AvrPtoB, HopF2 och HopB1 mål BAK1 medan effektorer av Xanthomonas oryzae Xoo2875 mål BAK1 homolog av Oryza sativa (OsBAK1). Bildandet av FLS2-BAK1-komplexet avbryts av AvrPto och AvrPtoB när de binder till BAK1. På liknande sätt riktar P. syringae AvrPphB och X. campestris AvrAC BIK1. Detta AvrPphB är ett cysteinproteas som bryter ned PBS1-liknande kinaser, som BIK1 medan uridylyltransferaset AvrAC fosforylerar för aktiveringsslingan av BIK1. Detta visar att inhibering av växternas kinaser är fördelaktigt och fördelaktigt för bakteriella patogener [32].
2.2. Svampar
Irieda och medarbetare (2019) [32] rapporterade en ny kärneffektor PAMP, som är mycket konserverad i trådsvampar, kallad nekrosinducerande utsöndrat protein 1 (NIS1). Denna effektor riktar sig mot RLK (BAK1) och RLCK (BIK1) kinaserna och inducerar därigenom PTI-signalering i växterna. Denna effektor rapporterades först [33] från Nicotiana benthamiana, eftersom den orsakade celldöd på grund av patogenen, gurkantraknossvamp Colletotrichum orbiculare. Detta är involverat i undertryckandet av multipla PTI-svar i Nicotiana benthamiana genom att undertrycka oxidativ utbrott och överkänsliga svar följt av patogensignaturerna.
På liknande sätt undertrycker svampen Magnaporthe Oryza NIS1 (erhållen genom horisontell överföring) också vissa svar av PTI medan homologen av NIS1 i Colletotrichum tofieldiae (en rotendofyt) visar liknande svar genom att undertrycka oxidativ utbrott i Nicotiana benthamiana. NIS1 är bevarad i Ascomycota och Basidiomycota och antyder att den ärvs och upprätthålls genom generationer. Nyligen rapporterades [34] att mossan, Physcomitrella patens, kan detektera kitin och därigenom aktivera RLK-CERK1 (chitin elicitor receptor kinase 1; kitin receptor in moss) svar. Således ärvs RLK-beroende PAMP-igenkänning uråldrigt i växter [32].
Riskitin-elicitorbindande protein (CEBiP) innehåller extracellulära LysM-motiv för att binda kitin, men en intracellulär kinasdomän saknas. Med hjälp av RNAi visades det att CEBiP krävs för kitininducerat försvar i ris. CERK1 av Arabidopsis innehåller tre LysM-motiv i den extracellulära domänen och en intracellulär Ser/Thr-kinasdomän krävs för uppfattningen av kitin och binder direkt till kitin in vitro. Det förväntas att CERK1 bildar en heterodimer med CEBiP för att binda kitin. Överraskande fann man att CERK1 spelar en viktig roll i sjukdomsresistens mot P. syringae-bakterier, vilket ökar möjligheten att det också förmedlar uppfattningen av en okänd bakteriell PAMP [35-39].
2.3. Virus
Virushärledda nukleinsyror (VDNA) kan också aktivera PAMP-igenkänningsreceptorer och VDNA-PAMPs har rapporterats framkalla den Nuclear Shuttle Protein-Interacting Kinase 1 (NIK1)-medierad antiviral signalväg som transducerar en antiviral signal för att undertrycka global värdtranslation [ 40]. Den klassiska växt-PTI begränsar på liknande sätt virusinfektion jämfört med icke-virala patogener, såsom att först genomgå föraktivering av PTI med icke-virala PAMPs som ger resistens mot virusinfektion, vilket indikerar att PTI-inducerade immunsvar ger skydd mot virus [41], och för det andra , undertrycka PTI av patogenerna för att framgångsrikt kolonisera en värd [40].
3. Effektorutlöst immunitet (ETI)
Under evolutionsprocessen har växter utvecklat R (resistens) proteiner som kan identifiera några av de många effektorer som produceras av patogener för att aktivera deras försvarsmekanismer. Tabell 1 listar några av de viktigaste effektorerna som produceras av patogener och deras R-gener. Grundstenen lades av det koncept som gavs av Flor (1971) [42] för bestämning av receptor-effektorigenkänning [43].
Flor-konceptet för gen-för-gen-hypotesen säger att för varje resistensgen i värden finns det en motsvarande gen för avirulens hos patogenen som ger resistens och vice versa [42]. Effektorerna som känns igen av R-proteinerna kallas avirulens (Avr) proteiner och patogenen som innehåller detta kallas en avirulent patogen. Dessa R-proteiner är primärt intracellulära nukleotidbindande leucinrika repeterande (NB-LRR) proteiner och kan kategoriseras baserat på närvaron av variabel N-terminal spiralformad och toll/interleukin 1-receptorliknande proteinfamiljer (CC eller TIR NB-LRR) ) [44].
Den spiralformade NB-LRR (CNL) finns generellt i både enhjärtbladiga och tvåhjärtade, medan den senare på TIR NB-LRR (TNL) endast finns i tvåhjärtbladiga [39]. Både mönsterigenkänningsreceptorer och NLR: er initierar nedströms signaleringsnätverk och leder därmed till uttryck av försvarsrelaterade gener, produktion av reaktiva syrearter (ROS) och kallosavsättning [45].
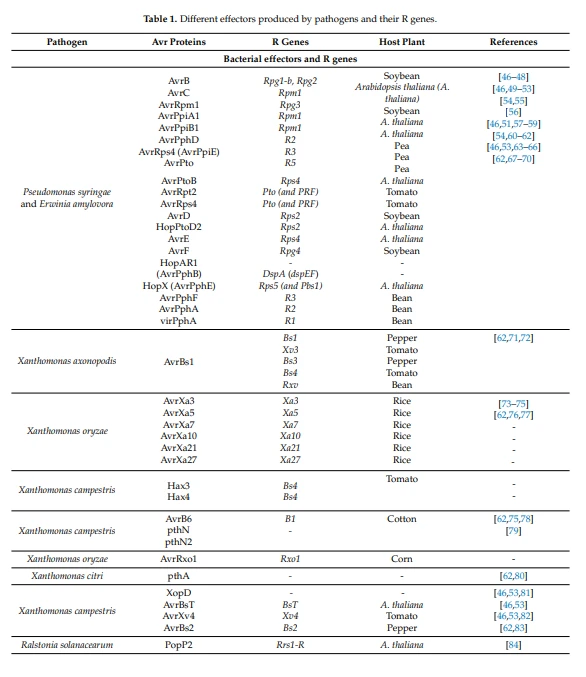

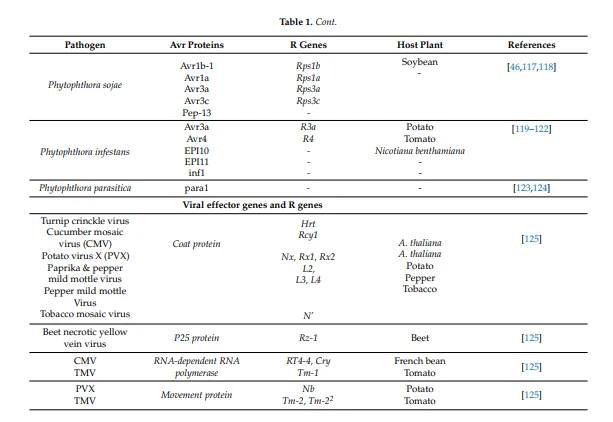
Det första steget i signaltransduktion i ETI är igenkännandet och identifieringen av Avr- och R-proteiner som ofta överhör med PTI. Till exempel interagerar R-proteinet från Arabidopsis, RRS1-R med effektorproteinet, PopP2 (TIR NB-LRR) effektor med en förlängning av WRKY vid C-terminalen när den frisätts av bakterien, Ralstonia solanacearum. Detta RRS1-R-PopP2-komplex translokeras sedan till kärnan för reglering av andra nedströmsvägar [44]. En avirulent bakterie, P. syringae (Pst) DC3000 (avrRpt2), aktiverar resistensen mot P. syringae 2 (RPS2)-beroende ETI i vildtypsväxter, medan den inte är effektiv mot två Arabidopsis PRR och co-receptormutanter, nämligen fls2 ever cerk1 (fec) och bak1 bkk1 cerk1 (BBC) [45], vilket visar att PRR och coreceptors spelar en viktig roll i ETI-signalering.
Plant DAMPs identifierades i Arabidopsis som HMGB-protein AtHMGB3 [8]. I allmänhet har alla växter HMGB1-relaterade proteiner och Arabidopsis har 15 gener som kodar för HMG-box-domäninnehållande proteiner [126]. De har delats in i fyra grupper: (i) proteiner av HMGB-typ, (ii) A/T-rika interaktionsdomän (ARID)-HMG-proteiner, (iii) 3xHMG-proteiner som innehåller tre HMG-boxar och (iv) strukturen -specifikt igenkänningsprotein 1 (SSRP1) [126]. Baserat på deras nukleära läge och domänstruktur, tros de åtta proteinerna av HMGB-typ (HMGB1/2/3/4/5/6/12/14) fungera som arkitektoniska kromosomala proteiner, liknande däggdjurs-HMGB1. Noterbart är AtHMGB2/3/4, proteiner av HMGB-typ, närvarande i cytoplasman och såväl som kärnan [126,127].
Den cytoplasmatiska funktionen hos dessa proteiner är ännu inte känd. Emellertid bör de cytoplasmatiska subpopulationerna ha större tillgång till det extracellulära utrymmet (apoplast) efter cellulär skada jämfört med AtHMGBs uteslutande i kärnan [126,127], eftersom de inte är bundna till DNA och bara behöver passera plasmamembranet för att komma in i apoplast. Subpopulationen av AtHMGB3 gav upphov till möjligheten att detta protein har en liknande funktion som DAMP eftersom rekombinant AtHMGB3 infiltrerades i Arabidopsis-löven och uppvisade DAMP-liknande aktiviteter som liknar dem för AtPep1, vid behandling med antingen proteininducerad MAPK-aktivering, kallosdeposition , försvarsrelaterat genuttryck och ökad resistens mot nekrotrofisk Botrytis cinerea [8].
Storskaliga förändringar i genuttryck finns i Arabidopsis thaliana genom MAPK-aktivering [128]. Kromatinombyggnaden i Arabidopsis thaliana vid utmaning med en syntetiskt framställd 22 aminosyror lång flagellinpeptid (flg22) som härmar svaret på bakteriella patogener. Flg22 känns igen i Arabidopsis av plasmamembranet leucinrika repeterande receptorkinas (LRR-RK) FLS2 och aktiverar två MAPK-signalvägar som initierar en rad försvarssvar, inklusive produktion av flera hormoner, reaktiva syrearter och induktion av en stor uppsättning försvarsgener, processer som vanligtvis kallas MAMP-utlöst immunitet (MTI) [128].
Den andra typen av immunitet hänvisas till som effektorutlöst immunitet (ETI), som skapas av nukleotidbindande oligomeriseringsdomän (NOD)-liknande receptorer (NLR) och resistensgener (R), som detekterar effektormolekylerna som produceras av mikroorganismer [128]. De genetiska och molekylära bevisen antydde att funktionella NLR-par existerar, och processer som NLR-självassociation och heteromera NLR-sammansättningar är nyckeln i utlösningen av nedströms signalvägar [129]. Dessutom är mångsidigheten och effekten av samverkande NLR-par kombinerat med patogena sinnen kopplade till initieringen av försvarssignalering i både växt- och djurimmunitet, och olika NLR-receptormolekylära konfigurationer ger möjligheter för att finjustera resistensvägar och förstärka värdens patogenigenkänningsspektrum. att hålla jämna steg med snabbt utvecklande mikrobiella populationer [129].
Konceptet med R-gener härrörde från Flors hypotes om genen för genen i fallet med patogen-värd virulensfaktorer [42]. Vidare föreslog han att specifika sensorer för mikrobiella molekyler finns i deras värdar och utesluter inte att variabilitet i dessa R-gener finns i endast ett fåtal växtsorter, och även många R-gener ger inte bredspektrumresistens, vilket specificerar resistens mot endast vissa raser av en viss patogen art. Dessa är aktiva primärt inuti cellen, med användning av polymorfa NB-LRR-proteinprodukter som kodas av R-gener.
De är uppkallade efter deras karakteristiska nukleotidbindande (NB) och leucinrika upprepade (LRR) domäner [130]. NB-LRR-proteiner är i stort sett relaterade till animaliska CATERPILLER/NOD/NLR-proteiner och STAND ATPaser [6]. Patogeneffektorer från olika riken känns igen av NB-LRR-proteiner och aktiverar liknande försvarssvar. Intressant nog är NB-LRR-medierad sjukdomsresistens effektiv mot patogener som bara kan växa på levande värdvävnad (obligat biotrofer), eller hemibiotrofa patogener, men inte mot nekrotrofa patogener [131].
Det har redan diskuterats tidigare att virulensstrategin för växtceller leder till syntesen av proteiner av intracellulärt motstånd (R), som specifikt känner igen patogeneffektorer av avirulensfaktorer (Avr) och aktiverar ETI. Avgörande bland ETI-triggarna är de gener som svarar på virusinfektioner i växter. En viktig komponent är cellväggen i växter, vars modifieringar sker i växter under virusinfektion, vilket är dåligt känt för närvarande. En omfattande studie beskriver uttrycket av generna för potatisexpansin A3 (StEXPA3) och potatisextension 4 (StEXT4) i Potato Virus Y NTN (PVYNTN)-känsliga och -resistenta potatisväxtinteraktioner [132].
Dessutom indikerade denna studie att intracellulär distribution och överflöd av StEXPAs och HRGPs kan regleras differentiellt, vilket beror på olika typer av PVYNTN-potatisväxtinteraktioner och bekräftade ytterligare involveringen av apoplast- och symplastaktivering som en försvarssvarsmekanism [132]. I en heterogen blandning av celler vid olika infektionsstadier i växter är förhållandena mellan virusackumulering vid de givna platserna och de åtföljande värdsvaren om förändrade värdgenuttryck inte väl förstått för närvarande.
En signifikant studie om detta avslöjade dock att det fanns väsentligt förändrade uttrycksprofiler över gradienter av virusackumulering inom de spännande grupperna av celler i olika stadier av infektion [133]. Otulak-Kozieł gav ny insikt i cellväggsombildning under PVYNTN-infektion som ett svar på biotiska stressfaktorer och indikerade in situ-fördelning av hemicellulosacellväggsmatriskomponenterna för överkänsliga och mottagliga potatis-PVYNTN-interaktioner [132]. De beskrev vidare att den överkänsliga reaktionen ledde till aktiveringen av XTH-Xet5 i områdena för xyloglukan endo-transglykosylas (XET) syntes, följt av dess aktiva transport till cytoplasma, cellvägg och vakuoler [134].

Ytterligare studier av Chen et al. (2017) [135] föreslog att gener som deltar i stresssvar, transkription, transport och cellvägg visade sig ha ändrat uttryck under PVY-infektionsstadiet. De hävdar att de signalerings- och transkriptionsrelaterade generna nästan uppreglerades efter 12 timmar, 1 eller 2 dagar, medan stressresponsgener nästan uppreglerades i ett senare skede [135]. I huvudsak är växtimmunsystemet erkänt som ett komplext nätverk där cellväggen och dess väsentliga proteinkomponenter spelar en betydande roll vid ombyggnad av cellväggen.
Viktiga framsteg som gjorts i forskning om växtvirusets inverkan på cellväggsremodellering av okänsliga och resistenta växter visar att komponenterna i cellväggsmetabolismen kan påverka spridningen av viruset samt aktivera de apoplast- och symplastbaserade försvarsmekanismerna [136]. Det cellväggsbaserade multikomplexa nätverket kan belysas utförligt med hjälp av några sofistikerade avancerade verktyg, såsom atomkraftsmikroskopi, datorbaserade simuleringar av mekaniska egenskaper hos deras komponenter, elektronisk tomografi för deras mutanter och många andra [136].
For more information:1950477648nn@gmail.com