Proteasen Calpain2a begränsar medfödd immunitet genom att rikta in sig på TRAF6 i Teleost Fish
Dec 19, 2023
TNF-receptorassocierad faktor 6 (TRAF6) spelar en viktig signaltransduktionsroll i både antibakteriella och antivirala signalvägar. Men de reglerande mekanismerna för TRAF6 i lägre ryggradsdjur rapporteras mindre. I denna studie identifierar vi calpain2a, som en medlem av den kalciumberoende proteasfamiljen med unik hydrolytisk enzymaktivitet, och fungerar som en nyckelregulator för antibakteriell och antiviral immunitet hos teleostfisk. Vid lipopolysackarid (LPS) stimulering främjar nedbrytning av calpain2a uppregleringen av inflammatoriska cytokiner. Mekanistiskt interagerar calpain2a med TRAF6 och minskar proteinnivån av TRAF6 genom att hydrolysera. Efter förlust av enzymatisk aktivitet hämmar mutant calpain2a konkurrenskraftigt dimerbildning och auto-ubiquitination av TRAF6. Nedbrytning av calpain2a främjar också cellulärt antiviralt svar. Mutant calpain2a som saknar hydrolasaktivitet undertrycker ubiquitination av IFN regulatory factor (IRF) 3/7 från TRAF6. Sammantaget klassificerar dessa fynd calpain2a som en negativ regulator av medfödda immunsvar genom att rikta in sig på TRAF6 i teleostfisk.

cistanche tubulosa-förbättra immunförsvaret
Som den första försvarslinjen mot invaderande patogener spelar medfödd immunitet en viktig roll för att skydda kroppen från bakterieinvasion och virusinfektioner. Mönsterigenkännande receptorer (PRR) på membranet känner omedelbart igen patogenassocierade molekylära mönster (PAMPs) 1–3. De tre mest studerade PRR i medfödd immunitet är Toll-like receptors (TLRs), RIG-I-like receptors (RLRs) och NOD-like receptors (NLRs), som känner igen olika PAMPs och utlöser signalkaskader för att aktivera proinflammatoriska cytokiner och antiviral faktor 4–6. TNF-receptorassocierad faktor (TRAF) 6 är en oumbärlig del av kampen mot bakterieinvasion och virusinfektioner. Som en viktig signalväg aktiverad av lipopolysackarid (LPS), har nukleär transkriptionsfaktor-KB (NF-KB)-vägen kartlagts i detalj. De flesta av proteinfunktionerna i NF-KB-signalvägen har studerats omfattande1,7. Myeloid differentieringsfaktor 88 (MyD88) aktiveras först av TLRs som svar på LPS, och IRAK4 fungerar som en mediator genom att aktivera IRAK1 och IRAK2, som länkar MyD88 till TRAF68–11. Ubc13 och Uev1A katalyserar den K63-länkade ubiquitineringen av TRAF6, som överför K63 ubiquitinkedjan till TAB2 och TAB3, vilket leder till aktiveringen av TAK112–16. TRAF6-reglerad IKK-aktivator 2 (TRIKA2) som är sammansatt av TAK1, TAB1 och TAB2, aktiverar hämmare av IκB-kinas (IKK)/fosforylering17–19. Transkriptionsfaktor NF-KB går in i kärnan och främjar produktionen av inflammatoriska cytokiner20. När TLR7/9 känner igen viruset sänder MyD88- IRAKs-TRAF6-komplexet signaler till IFN regulatory factor (IRF) 7, främjar IRF7 ubiquitination och aktiverar dess fosforylering in i kärnan21,22. I RLR-signalvägen aktiverar RIG I och melanomdifferentieringsassocierad gen 5 (MDA5) mitokondriellt antiviralt signalprotein (MAVS)23,24. Aggregeringen av MAVS är ett viktigt inslag i början av RLR-signalöverföring23,25,26. TRAF2/3/6 är de första faktorerna som aktiveras av MAVS27,28. TRAF3 kommer att aktivera TBK1-IRF3-signalering, och MAVS-TRAF6-komplexet kommer att aktivera NF-KB-signalering, vilket främjar IFN-1-uttryck27,29.

cistanche fördelar för män stärker immunförsvaret
Den molekylära mekanismen för TRAF6-aktivering har redan visats. TRAF6 i dimerform genomgår autoubiquitination under katalys av Ubc13 och Uev1A, vilket är relaterat till ringfingerdomänen och ZF fingers domän. Modellen för TRAF6/Ubc13~UB bekräftar TRAF6-dimerens viktiga roll i aggregeringen och överföringen av K63 ubiquitinkedjan30. Dessutom har det rapporterats att domänen för ringfinger och ZF-fingrar rekryterar E2~ub-konjugat i zebrafisken TRAF6 kristallmodell, och det upptäcktes att TRAF6 kunde bilda en heterodimer med TRAF5 från samma TRAF-familj för första gången16. Deubikvitineringsfamiljens proteiner: A20, CYLD, USP2a, USP4 och USP20 mål TRAF6 för att ta bort K63-länkad ubikvitinering och minska nedströmssignalering31–35. Jäst tvåhybridsystemet sållar bort interaktionen mellan UBE2O och TRAF6 och bekräftar att denna interaktion direkt påverkar aktiveringen av TRAF6 av MyD8836. I nedströms signaltransduktionsprocessen av TRAF6 interagerar ECSIT som ett intermediärt protein med TRAF6 respektive TAK1, och denna interaktion stärker bindningen av TRAF6 och TAK137. I LPS-inducerad TLR4-signalering förhindrar PRDX TRAF6 från att rekrytera ECSIT för att leverera K63 ubiquitinkedjan och även hämmar BECN1 aktiverad av TRAF6 i autofagivägen38. MST4 aktiverar TRAF6-fosforylering vid Thr463 och Thr486 och hämmar TRAF6-dimerisering och ubiquitination39. Hos däggdjur har proteinregleringsmekanismen för TRAF6 studerats brett i antibakteriell och antiviral immunitet. Forskningen av TRAF6 hos lägre ryggradsdjur är dock mindre studerad. Immunsvaret hos teleostfisk är huvudsakligen beroende av TLR- och RLR-vägar för att utföra immunsvaret efter patogeninfektion. Därför är det avgörande att utforska den reglerande mekanismen för TRAF6-förmedlade signalvägar. calpain2 (m-calpain) är en familj av kalciumberoende proteaser, som består av mer än 16 medlemmar i däggdjur och många andra organismer40. Den tidigaste studien av calpainproteinfamiljen är relaterad till cellrörelse41. calpain främjar cellmigration och visade sig hämma neutrofilmigrering och aktiveringen av p38 MAPK och ERK MAPK42. Hydrolasets aktivitet är en av de viktiga funktionerna hos kalpain. I immunreglering främjar calpain-2 frisättningen av NF-KB genom att hydrolysera IkB och aktiverar signalvägen43. I denna studie har vi bestämt att calpain2a interagerar med TRAF6 och fungerar som en negativ regulator i antibakteriella och antivirala svar hos teleost fisk, miiuy croaker (Miichthys miiuy). calpain2a främjar nedbrytningen av TRAF6-proteinnivån genom dess hydrolasaktivitet. Samtidigt hämmar mutant calpain2a som saknar hydrolasaktivitet bildningen av K63 ubiquitinkedjan genom att hämma dimeren av TRAF6. Det återspeglas att både calpain2a och mutant calpain2a avslutar ubiquitineringen av TRAF6 till ECSIT/BENC1/IRF3/IRF7. calpain2a stoppar NF-KB och IFN-signaleringsprocessen genom att rikta in sig på TRAF6. Våra resultat ger en molekyl för studiet av TRAF6-förmedlad immunreglering hos lägre ryggradsdjur.
Resultat
calpain2a interagerar med TRAF6 och reglerar negativt NF-KB-signalering.
För att få insikter i TRAF6-associerade proteiner i medfödd immunitetssvar hos teleostfisk, karakteriserade vi miiuy croaker TRAF6 interactome med affinitetsrening och masspektrometri. Sorterat efter etikettfri kvantifieringsintensitet (LFQ), fångade vi en del av data och visade den (Fig. 1a). Bland TRAF6-associerade proteiner kan calpain2a reglera TRAF6-aktivitet och påverkade TRAF6-förmedlade signalvägar. För det första bör förhållandet mellan calpain2a och TRAF6 på proteinnivå undersökas, vi kontrollerade interaktionen mellan calpain2a och TRAF6 i Miiuy croaker njurcellinjer (MKC). Endogena coimmunoprecipitationsexperiment visade att calpain2a interagerar med TRAF6 (Fig. 1b, c). Som framgår av transient transfektion och coimmunoprecipitationsexperiment interagerade överuttryckt calpain2a och TRAF6 med varandra (Fig. Id, e). Alla dessa indikerar att calpain2a interagerar med TRAF6 och ytterligare experiment behövs för att undersöka mekanismen för deras verkan. Genom multipelsekvensinriktning av människor, mus, zebrafisk och kan croaker calpain2a-proteiner, är calpain2a evolutionärt konserverad mellan fisk och däggdjur (Fig. 1f). För att bestämma funktionen av calpain2a i medfödd immunitet undersökte vi om calpain2a var associerad med aktivering av NF-KB inducerad av LPS-stimulering. Vi transfekterade epithelioma papulosum cyprinid (EPC) celler med NF-KB luciferas reporter, intern kontroll renilla luciferas reporter och vektor som kodar calpain2a eller tom vektor. calpain2a reducerade avsevärt NF-KB-reporteraktivitet vid LPS-stimulering på ett dosberoende sätt (fig. 1g). Dessutom minskade proinflammatoriska cytokiner såsom IL-1 och IL-8-promotor som svarar på LPS-stimulering markant i calpain2a-överuttryckta EPC-celler (Fig. 1h, i), vilket tyder på en potentiell roll för calpain2a i inflammatorisk signalering vägar inducerade av LPS-stimulering.

cistanche tubulosa-förbättra immunförsvaret
Klicka här för att se produkter från Cistanche Enhance Immunity
【Be om mer】 E-post:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Negativ reglering av LPS-inducerad NF-KB-signalering av calpain2a.
För att undersöka den potentiella rollen av calpain2a i NF-KB-signalering, transfekterade vi calpain2a i MKC med en tidsgradient av LPS och bedömde proinflammatoriska cytokiner som svarar på LPS. Överuttryck av calpain2a ledde till nedreglering av uttrycket av IL-1, IL-8 och IL-6 (Fig. 2a). Därefter designade vi två calpain2a-specifika små störande RNA (siRNA) som effektivt nedreglerade calpain2a (Fig. 2b, d). Nedbrytning av calpain2a förstärkte signifikant LPS-inducerade proinflammatoriska cytokiner inklusive IL-1 och IL-8 i MKC och Miiuy croaker intestine cellinjer (MIC) (Fig. 2c, e). I gruppen av LPS-stimulerade celler förbättrade nedbrytningen av calpain2a cellproliferation. På samma sätt, i frånvaro av någon stimulering, fann vi att nedbrytning av calpain2a också förbättrade cellproliferation (Fig. 2f). För att bestämma om calpain2a hämmade proteiner i LPS-inducerad NF-KB-signalering, hämmade calpain2a markant endogen proteinnivå av TRAF6 men inte MyD88, IRAK4 eller TAK1 (Fig. 2g). Sammanfattningsvis antydde kinetiken för calpain2a och proinflammatoriskt cytokinuttryck funktionell involvering av calpain2a i LPS-inducerad NF-KB-signalering.

Fig. 1 calpain2a interagerar med TRAF6 och hämmar NF-KB-signalvägen. en lista över TRAF6-interaktom baserad på etikettfri kvantifieringsintensitet (avsnitt). b, c MKC-celler ympade i 6 cm2 skålar. Efter 24 timmar immunoutfälldes cellysat (IP) med anti-TRAF6- eller anti-calpain2a-affinitetsgeler. Därefter analyserades immunoutfällningen och cellysat med IB med anti-TRAF6 respektive anti-calpain2a Abs. d, e HEK 293-celler ympade i 6 cm2 skålar transfekterades med plasmiderna calpain2a-Flag och TRAF6-Myc (2 ug vardera). Efter 24 timmar immunutfälldes cellysat (IP) med anti-Myc d eller anti-Flag e affinitetsgeler. Därefter analyserades immunoutfällningarna och cellysaten med IB med anti-Myc respektive anti-Flag Abs. f Samma aminosyror bland human calpain2a (Hu-calpain2), mus calpain2a (Mu-calpain2), zebrafisk calpain2a (ZF-calpain2a) och miiuy croaker calpain2a (M-calpain2a) är markerade med svart bakgrund. g-I EPC-celler transfekterades med calpain2a-Flag eller tom vektor tillsammans med NF-KB, IL-1 och IL-8 luciferasreporter. Vid 24 timmar efter transfektion var cellerna obehandlade (Mock) eller behandlade med LPS i 6 timmar. Luciferasaktivitetsvärdet uppnåddes mot Renillas luciferasaktivitet (n=3 per grupp). Western blot-analys användes för att mäta uttrycket av den transient transfekterade calpain2a-flaggan. Uttrycket av Tubulin användes som en laddningskontroll. Data analyserades med tvåvägs ANOVA (g, h, i). **p < 0.01. Alla experiment utfördes i minst tre oberoende experiment.
Interaktionen mellan calpain2a och TRAF6.
Domänanalys gjordes med hjälp av Conserved Domain Database (CDD) NCBI. calpain2a består av tre domäner: en Calpain-familj cysteinproteas (CysPc) domän (aa 46-339), en central Calpain stor subenhet domän III (aa 360-499), och en C-terminal Penta-EF handdomän ( aa 500-697). För att avgöra vilken eller vilka domäner av calpain2a som krävdes för dess interaktion med TRAF6 skapade vi tre trunkeringsmutanter: calpain2a (1-339), calpain2a (340-697) och calpain (500-697) (Fig. 3a). HEK293-celler transfekterades med calpain2a-Flag vildtyp (WT), calpain2a-Flag trunkeringsmutanter eller TRAF6-HA-vektor. Vi fann att både fullängds calpain2a och tre trunkeringsmutanter kunde interagera med TRAF6 (Fig. 3c). TRAF6 består av en C-terminal TRAF-domän, en coiled-coil-domän, en Zinc fingers-domän och en ringfingerdomän38. För att undersöka vilken eller vilka domäner av TRAF6 som krävdes för dess interaktion med calpain2a, gjorde vi en serie TRAF6 trunkerade mutanter, inklusive TRAF6 (1-139), TRAF6 (140-574), TRAF6 ({{36 }}) och TRAF6 (400-574). Under tiden gjorde vi domänmutanterna: TRAF6ΔRing (där ringfingerdomänen är raderad), TRAF6ΔZF (där zinkfingrarnas domän är raderad), TRAF6ΔCC (där den lindade spoldomänen är raderad) och TRAF6ΔTRAF-C ( i vilken C-terminal TRAF-domän är raderad) (Fig. 3b). calpain2a interagerade med fullängds TRAF6 såväl som trunkationer av TRAF6 som innehöll C-terminal TRAF-domän, en coiled-coil-domän, en zinkfingerdomän (fig. 3d, f), men inte med ringfingerdomän (fig. 3e) . Luciferasanalyser visade att överuttryck av calpain2a och dessa trunkeringsmutanter signifikant hämmade NF-KB- och IL-1-reporteraktivitet i EPC-celler (Fig. 3h). Dessutom undersöktes de subcellulära kolokaliseringarna av calpain2a med TRAF6. Vi transfekterade EPC-celler med TRAF6-GFP och en tom vektor eller calpain2a-mCherry. Konfokal mikroskopianalys visade att de gröna signalerna från TRAF6 överlappade de röda signalerna från calpain2a, vilket indikerade att calpain2a samlokaliserar sig med TRAF6 i EPC-celler (Fig. 3i, j). Dessa data indikerar att den strukturella basen för multipla domäner av TRAF6 (C-terminal TRAF-domän, coiled-coil-domän, zinkfingerdomän) men inte ringfingerdomänen är avgörande för dess association med calpain2a (fig. 3g).
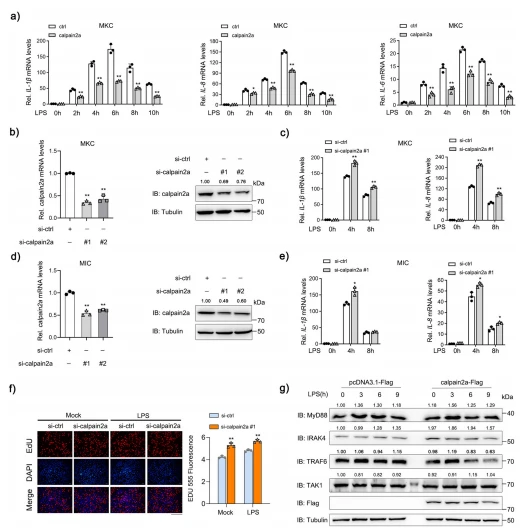
Fig. 2 calpain2a negativ reglerar LPS-inducerad NF-KB-signalväg. en IL-1, IL-8 och IL-6 mRNA i MKC transducerad med calpain2a-flagga eller tom vektor och behandlad med saltlösning (0) eller utmanad med LPS för olika gånger (2 timmar, 4 timmar, 6 timmar, 8 timmar, 10 timmar) (n=3 per grupp). b, d MKC-celler och MIC-celler transfekterades med si-calpain2a #1 och si-calpain2a #2 (100 nM) eller si-ctrl (100 nM). 48 timmar efter transfektion mättes calpain2a-uttryck med qRT PCR (n=3 per grupp). Nivån av calpain2a-protein bestämdes genom Western blotting. c, e IL-1, IL-8 mRNA i MKC och MIC stabilt transducerad med si-calpain2a #1 eller si-ctrl (kontrollvektor) och behandlad med saltlösning (0) eller utmanad med LPS för olika gånger (4 timmar, 8 timmar) (n=3 per grupp). f MKC-celler transfekterades med antingen si-ctrl eller si-calpain2a #1. 36 timmar efter transfektion stimulerades cellerna med LPS i 12 timmar, sedan mättes cellproliferationsanalysen (n=3 per grupp). Skalstång, 100 μm. g calpain2a-Flag transfekterades in i MKC-celler som utmanades med LPS vid olika tidpunkter (3 timmar, 6 timmar, 9 timmar). Immunoblotanalys av cellysat med indikerade Abs. Relativ mRNA-nivå normaliserades till uttrycket av genen som kodar för -aktin i varje prov. Alla experiment utfördes i minst tre oberoende experiment. Data analyserades med tvåvägs ANOVA (a, c, e, f) eller envägs ANOVA (b, d). *p < 0,05, **p < 0,01.

Fig. 3 Interaktionen mellan calpain2a och TRAF6. a, b Schematiska diagram av domänorganisation i miiuy croaker calpain2a, TRAF6 och mutanter användes i denna studie. "+" representerar interaktionen med TRAF6 eller calpain2a, "-" betyder ingen interaktion. c HEK293-celler transfekterades med mock, calpain2a-Flag vildtyp (WT) och calpain2a-Flag trunkerade mutanter, eller TRAF6-HA som indikeras. 24 timmar efter transfektion extraherades transfekterade celler och cellysat utsattes för immunoutfällning med anti-HA-antikropp följt av IB med användning av anti-HA eller anti-Flag-antikropp. d–f HEK293-celler transfekterades med mock, TRAF6-HA vildtyp (WT) och TRAF6-HA trunkerade mutanter eller calpain2a-Flag som indikerat. Vid 24 timmar efter transfektion extraherades transfekterade celler och cellysat utsattes för immunoutfällning med anti-HA-antikropp d, f eller anti-Flag-antikropp e följt av IB med användning av anti-HA eller anti-Flagg-antikropp. g Interaktionsstället för TRAF6 och calpain2a. h EPC-celler transfekterades med TRAF6-HA, calpain2a-Flag eller calpain2a-Flag trunkerade mutanter tillsammans med NF-KB och IL-1 luciferasreportrar. Efter 36 timmar efter transfektion uppnåddes luciferasaktivitetsvärdet mot renilla luciferasaktiviteten (n=3 per grupp). I j EPC-celler transfekterades med mock, calpain2a-mCherry och TRAF6-GFP. DAPI-färgade kärnor visas i blått. calpain2a detekterades med röd fluorescens och TRAF6 detekterades med grön fluorescens. Skalstapel, 10 μm. Alla experiment utfördes i minst tre oberoende experiment. Data analyserades med envägs ANOVA (h). **p < 0,01.
calpain2a hämmar TRAF6-proteinuttrycksnivån genom proteolytisk aktivitet.
För att utforska den reglerande mekanismen för calpain2a på TRAF6, undersökte vi först om calpain2a hade en effekt på TRAF6 på proteinnivå. calpain2a-Myc och TRAF6-Flagga samtransfekterades in i EPC-celler, proteinnivån av TRAF6 bröts delvis ned efter 30 timmar (Fig. 4a). Som visas i Fig. 4b främjade calpain2a nedbrytningen av TRAF6 på ett dosberoende sätt. I närvaro av calpain2a påverkade det inte mRNA-nivån av TRAF6, vilket indikerar att calpain2a endast påverkar proteinnivån för TRAF6. Samtidigt visade inhibitorcykloheximid-(CHX)-analysen att calpain2a kunde accelerera halveringstiden för TRAF6-proteinet (Fig. 4c). Överuttryck av calpain2a i MKC-celler resulterade i destabilisering av endogen TRAF6 (Fig. 4d). För att undersöka om nedbrytningen av TRAF6 medierad av calpain2a var beroende av ubiquitin-proteasom, autofagosomen, lysosomala vägar eller andra, behandlades EPC-celler med reagenserna som hämmade dessa vägar: MG132, 3-MA och NH4Cl. Den calpain2a-medierade destabiliseringen av TRAF6 vändes dock inte av den proteasomala hämmaren MG132, den autofagiska hämmaren 3-MA eller den lysosomala hämmaren NH4Cl (Fig. 4e). Därefter behandlades EPC-celler med reagensen: E-64 (en kalpainhämmare som inaktiverar kalpainhydrolasaktivitet) och PMSF (ospecifik serinproteashämmare). Vi fann att kalpainhämmare E-64 förhindrade nedbrytning på TRAF6-proteinnivån (Fig. 4f). Som visas i Fig. 4g, vände E-64 också nedbrytningen av endogena TRAF6-proteinnivåer av calpain2a.
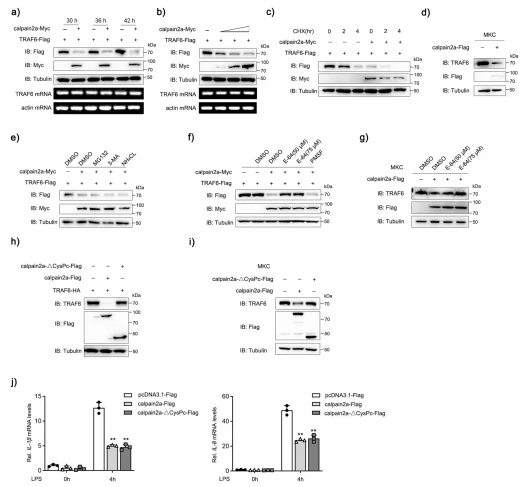
Fig. 4 calpain2a hämmar TRAF6-proteinuttryck. a Tidsgradientexperimentet av tomma vektorer eller calpain2a-Myc-plasmider tillsammans med TRAF6- Flag utfördes i EPC-celler. Cellysaten utsattes för IB med anti-Myc, anti-Flag och anti-Tubulin Abs. RNA extraherades från celler och omvänt transkriberades, och sedan amplifierades TRAF6 och aktin med PCR-primrar. b EPC-celler såddes i 12-brunnsplattor över natten och samtransfekterades med TRAF6-Flagga och calpain2a-Myc (0.3, 0.6 eller {{ 18}}.9 ug) i 48 timmar. Uttrycket av TRAF6-Flagga- och calpain2a-Myc-proteiner detekterades med Western blotting. RNA extraherades från celler och omvänt transkriberades, sedan amplifierades TRAF6 och aktin med PCR-primrar. c calpain2a-Myc eller tomma vektorer samtransfekterades med TRAF6-flagga till EPC-celler. 36 timmar efter transfektion behandlades de transfekterade cellerna med cykloheximid (CHX) i 2 eller 4 timmar. d MKC-celler transfekterades med calpain2a-Flag eller tomma vektorer. 48 timmar efter transfektion utsattes cellysaten för IB med anti-TRAF6, anti-Flag och anti-Tubulin Abs. e, f EPC-celler transfekterades med de angivna plasmiderna i närvaro eller frånvaro av MG132, 3-MA, NH4CL, E-64 (50 eller 75 μM), eller PMSF i 6 h innan immunoblotanalys utfördes. g MKC-celler transfekterades med calpain2a-Flag i närvaro eller frånvaro av E{{50}} (50 eller 75 μM) i 6 timmar innan immunoblotanalys utfördes. h calpain2a-Flag och calpain2a-ΔCysPc-Flag samtransfekterades med TRAF6-HA in i EPC-celler. 48 timmar efter transfektion utsattes cellysaten för IB med indikerade Abs. I calpain2a-Flag och calpain2a-ΔCysPc-Flag samtransfekterades in i MKC-celler. 48 timmar efter transfektion utsattes cellysaten för IB med anti-TRAF6, anti-Flag och anti-Tubulin Abs. j IL-1, IL-8 mRNA i MKC stabilt transducerat med calpain2a-Flag och calpain2a-ΔCysPc-Flag och behandlat med saltlösning (0) eller utmanat med LPS i 4 timmar (n=3 per grupp). Relativ mRNA-nivå normaliserades till uttrycket av genen som kodar för -aktin i varje prov. Alla experiment utfördes i minst tre oberoende experiment. Data analyserades med tvåvägs ANOVA (j). **p < 0,01.
För att bestämma om nedbrytningen av TRAF6 var beroende av hydrolasaktiviteten hos calpain2a. Genom att dra fördel av tidigare strukturella och biokemiska studier av calpain2a hos däggdjur, muterade vi cystein-, histidin- och asparaginresterna av calpain2a till alanin (calpain2a C105A, H262A, N286A och 3 A), vilket förlorade den katalytiska triadkoordinationen. Vi observerade att nedbrytningen av TRAF6 inte påverkades av denna mutation (kompletterande Fig. 1a). Så vi muterade proteasdomänen, som är Calpain-familjens cysteinproteasdomän (CysPc) av calpain2a (betecknad som calpain2a-ΔCysPc). Varken överuttryckt TRAF6 eller endogen TRAF6 påverkas av calpain2a-ΔCysPc (Fig. 4h, i). Emellertid påverkas proinflammatoriska cytokiner IL-1 och IL-8 samtidigt av vildtyp eller muterad calpain2a vid LPS-stimulering (Fig. 4j). Mutant calpain2a som saknar hydrolasaktivitet påverkar inte proteinnivån av TRAF6, men mutant calpain2a som saknar hydrolasaktivitet påverkade fortfarande uttrycket av nedströms pro-inflammatoriska cytokiner. Detta utlöste vår undersökning av de potentiella mekanismerna genom vilka calpain2a reglerar TRAF6. Sammantaget avslöjar dessa resultat att calpain2a reglerar NF-KB-signalering genom att undertrycka uttrycket av TRAF6-proteinnivåer genom dess calpainhydrolasaktivitet.
calpain2a hämmar TRAF6 ubiquitin-ligasaktivitet.
Därefter undersökte vi de molekylära mekanismerna genom vilka calpain2a negativt reglerar TRAF6-aktiverad NF-KB-signalering, och om calpain2as interaktion med TRAF6 vid förlust av enzymatisk aktivitet modulerar dess ubiquitinligasaktivitet. Vi behandlade MKC-celler med LPS och immunutfällde sedan TRAF6. Ubiquitination assay med renade rekombinanta proteiner bekräftade att calpain2a och calpain2a-ΔCysPc minskade ubiquitination av TRAF6 (Fig. 5a). Såsom visas i Fig. 5b, c, reducerade både calpain2a och calpain2a-ΔCysPc signifikant WT- och K63-ubiquitinerade proteiner av TRAF6. Koncentrationsgradienter av calpain2a och calpain2a-ΔCysPc reducerade WT och K63 ubiquitinerade proteiner av TRAF6 på ett dosberoende sätt. calpain2a-ACysPc förhindrade fortfarande K63 ubiquitin-kedjeaggregation av TRAF6 utan att påverka TRAF6-proteinnivån (Fig. 5d, e). Sedan transfekterade vi MKC-celler för att uttrycka Myc-märkt TRAF6 i närvaro eller frånvaro av Flag-märkt calpain2a-ΔCysPc, utförde sedan immunoutfällningsexperiment med en anti-Myc-antikropp och analyserades med immunoblot med anti-UB. Sådan ubiquitinering av TRAF6 försvagades avsevärt av calpain2a-ACysPc (fig. 5f). Stimulerad av LPS levererar TRAF6 K63-länkad ubiquitinkedja till TAK1, vilket stimulerar TAK1-autofosforylering och aktiverar NF-KB18. WT- och K63-ubiquitinproteiner av TAK1 förstärktes signifikant i närvaro av TRAF6, medan TAK1--kopplad ubiquitinering hämmades i närvaro av calpain2a-ΔCysPc (fig. 5g, h). Dessa data stödjer att mutant calpain2a som saknar hydrolasaktivitet på liknande sätt hämmar TRAF6 ubiquitinligasaktivitet utan att påverka TRAF6-proteinnivåerna.

Fördelarna med cistanche tubulosa-stärka immunförsvaret
calpain2a hämmar TRAF6 homo-oligomerisering.
Lys63 ubiquitinkedjan syntetiserad av TRAF6 spelar en nyckelroll i signaltransduktion. Det har rapporterats att dimeriseringen av TRAF6 är väsentlig för syntesen av dess ubiquitinkedja16. Dimeriseringsmodellen är nära relaterad till kombinationen av Ubc13 för att producera K63 ubiquitination16,30. För att verifiera om fisken TRAF6 kunde bilda dimerer använde vi TRAF6-plasmider med olika taggar: Myc-märkt TRAF6 och HA-märkt TRAF6 för co-IP-experiment. IP-analys utfördes med användning av en anti-HA-antikropp, HATRAF6 interagerade med Myc-TRAF6 (Fig. 6a). För att utforska den hämmande effekten av calpain2a i TRAF6-dimerinteraktionen uttrycktes flaggmärkt calpain2a, HA-märkt TRAF6 och Myc-märkt TRAF6 tillfälligt i HEK293-celler. Som förväntat minskade TRAF6-dimerinteraktionen i närvaro av calpain2a (Fig. 6b). Samtidigt, för att undvika närvaron av nedbrytningen av TRAF6 av calpain2a. Vi transfekterade flaggmärkt calpain2a-ΔCysPc och fann att TRAF6--dimerinteraktionen gradvis minskade i närvaro av calpain2a-ΔCysPc (Fig. 6c). Som visas i Fig. 6d, e, fann vi HA-TRAF6 förstärkt WT och K63 ubiquitination av Myc-TRAF6. Medan HEK293-celler samtransfekterades med calpain2a och calpain2a-ΔCysPc, skulle den förbättrade ubiquitineringen undertryckas. Dessa resultat tyder på att både vildtyp calpain2a och mutant calpain2a som saknar hydrolasaktivitet hämmar TRAF6 homoligomerisering och auto-ubiquitination.
calpain2a hämmar leveransen av TRAF6 ubiquitination till ECSIT och BECN1.
Som avbildats i Fig. 5d fann vi att calpain2a störde ubiquityleringsprocessen från TRAF6 till TAK1. Det har rapporterats att ECSIT fungerade som ett adapterprotein av TAK1 och TRAF6 för att främja NF-KB-signalering genom LPS-stimulering37. För att verifiera om ECSIT hade de nämnda funktionerna i teleostfisk, utförde vi flera sekvensanpassningar av ECSIT-proteiner i människa, mus och kan croaker (kompletterande fig. 1b). Vi transfekterade EPC-celler med NF-KB-luciferasreporter, ECSIT förbättrade signifikant NF-KB-reporteraktivitet efter LPS-stimulering (kompletterande fig. 1c). Överuttryck av ECSIT i MKC-celler ledde till uppreglering av mRNA-nivån av TNF- (kompletterande Fig. Id). Efter transfekterad fisk ECSIT och TRAF6 i HEK293-celler fann vi att TRAF6 interagerade med ECIST (Fig. 7a). På liknande sätt samtransfekterades ECSIT och TAK1, och de två proteinerna bibehöll också interaktion (Fig. 7b). Därefter, för att verifiera om calpain2a-ΔCysPc hämmar bildningen av TRAF6-ECSIT-komplexet, transfekterade vi de tre plasmiderna till HEK293-celler och fann att calpain2a-ΔCysPc förhindrade TRAF6-ECSIT-komplexet (fig. ). För att verifiera överföringsprocessen för ubiquitinkedjan i NF-KB-signalering. Såsom visas i fig. 7d kan TRAF6 främja ubiquitinering av ECSIT; som förväntat hämmade calpain2a-ΔCysPc processen genom vilken TRAF6 överförde ubiquitinkedjan till ECSIT. BECN1 är ett viktigt protein i LPS-inducerad autofagi. Det har bekräftats att K63 ubiquitination kan modifiera och aktivera BECN1. Deubiquitinating enzym A20 tar bort ubiquitination av BECN1 och hämmar autofagi orsakad av LPS, och TRAF6 är E3-ligas som ansvarar för BECN1 ubiquitination i denna signal47. Som visas i Fig. 7e interagerade TRAF6 med BECN1 och främjade ubiquitinering av BECN1. Sedan transfekterade vi BECN1, TRAF6, calpain2a och calpain2a-ΔCysPc till HEK293-celler, TRAF6 främjade ubiquitination av BECN1. calpain2a-ΔCysPc hämmade processen genom vilken TRAF6 överförde ubiquitinkedjan till BECN1 (Fig. 7f). Dessa resultat tyder på att vildtyp calpain2a och mutant calpain2a som saknar hydrolasaktivitet hämmar ubiquitineringsförmågan hos TRAF6 i LPS-inducerad autofagi och NF-KB-signalering.
Negativ reglering av antiviralt svar av calpain2a.
I RLR-vägen fungerar TRAF6 som ett E3-ligas rekryterat av MAVS för att aktivera NF-KB, produktionen av IFN och cytokiner. Vi undersökte sedan om calpain2a spelade en roll för att förhindra TRAF6 i den IFN-medierade antivirala processen. I EPC-celler uttrycktes IFN-1-, ISRE- och IRF3-promotordrivna luciferasreportrar. Vi fann att calpain2a avsevärt minskade dessa promotordrivna luciferasaktiviteter på ett dosberoende sätt vid Ploy(I:C)-stimulering och Siniperca-fusk-rhabdovirus- (SCRV)-infektion (fig. 8a, b). Knockdown av calpain2a förbättrade signifikant Ploy (I: C) och SCRV-utlöst genuttryck inklusive Viperin, Mx1 och ISG15 (Fig. 8c, d). Nedbrytning av calpain2a resulterade i högre uttryck av cellviabilitet vid SCRV-infektion i MKC-celler (Fig. 8e). Som visas i Fig. 8f visade cellproliferationsanalyser att nedbrytning av calpain2a förstärkte cellproliferation vid SCRV-infektion. Överuttryck av calpain2a främjade kraftigt virusutbredning, vilket återspeglas av viral replikation efter SCRV-infektion (fig. 8g). calpain2a och calpain2a-ΔCysPc reducerade väsentligt IFN-1, ISRE och IRF3-promotordrivna luciferasreportrar vid Ploy(I:C)-stimulering och SCRV-infektion (kompletterande fig. 2a, b). Dessa resultat tyder på att calpain2a negativt kan reglera RLR-signalvägen genom hämning av TRAF6, och därigenom hämma aktiveringen av IFN.
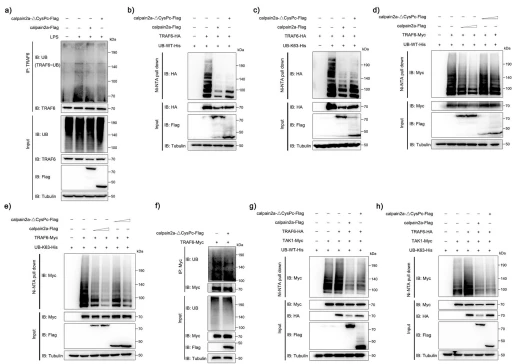
Fig. 5 calpain2a hämmar TRAF6 ubiquitin-ligasaktivitet. en Ubiquitination av endogen TRAF6 i MKC-celler transducerade med calpain2a-Flag och calpain2a-ΔCysPc-Flag och ohotad (−) eller utmanad med LPS (+), bedömd genom immunoblotanalys med anti-ubiquitin efter immunoutfällning med anti-TRAF6-analys och ingående immunoblotanalys med angivna Abs. b, c HEK293-celler samtransfekterades med TRAF6-HA och WT-ubiquitin-His eller K63O ubiquitin-His (där endast lysin 63 hålls) tillsammans med calpain2a-Flag, calpain2a-ΔCysPc-Flag eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. d, e HEK293-celler samtransfekterades med TRAF{{30}}HA och WT-ubiquitin-His eller K63O-ubiquitin-His (där endast lysin 63 hålls) tillsammans med calpain2a-Flag ({{45) }},5 ug, 1 ug), calpain2a-ΔCysPc-Flagga (0,5 ug, 1 ug) eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. f Ubiquitination av överuttryckt TRAF6 i MKC-celler transducerade med calpain2a-ΔCysPc-Flag, bedömd genom immunoblotanalys med anti-ubiquitin efter immunoutfällning med anti-Myc och ingående immunoblotanalys med indikerade Abs. g, h HEK293-celler samtransfekterades med TAK1-Myc, TRAF6-HA och WT-ubiquitin-His eller K63O-ubiquitin-His (där endast lysin 63 hålls) tillsammans med calpain2a-Flag , calpain2a-ΔCysPc-Flagga eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. Alla immunoutfällningar och inmatad immunoblotanalys med anti-Myc, anti-Flag, anti-HA och anti-Tubulin Abs. Alla experiment utfördes i minst tre oberoende experiment.
calpain2a undertrycker ubiquitination av IRF3 och IRF7 från TRAF6.
Det rapporteras att i den antivirala signalen som utlöses av MAVS-TRAF3/6-komplexet är aktiviteten hos TRAF6 nödvändig för aktiveringen av IRF3 och NF-KB48. Som visas i Fig. 9a, b främjar TRAF6 WT- och K63--kopplad ubiquitination av IRF3, och denna förbättring hämmas av uttrycket av calpain2a-ΔCysPc. Samtidigt, när viruset utlöser en TLR-beroende signalsignal, är TRAF6 nära besläktad med IRF7 och främjar ubiquitination av IRF7 tillsammans med antivirala faktorer aktiverade22,49,50. TRAF6 främjar WT- och K63--kopplad ubiquitination av IRF7, och denna förbättring hämmas av uttrycket av calpain2a-ΔCysPc (Fig. 9c, d). Dessa data tyder på att vildtyp calpain2a och mutant calpain2a som saknar hydrolasaktivitet hämmar TRAF6-förmedlad ubiquitination av IRF3 och IRF7.
Diskussion
TRAF6 är en av de sju medlemmarna i familjen tumörnekrosfaktor (TNF) receptorassocierade faktorer (TRAF), som har identifierats som en signaladapter och utövar signaltransduktion51,52. TRAF-familjen innehåller ringfingerdomänen, som äger E3-ligasaktiviteten. E3-ligaser med HECT-domänen främjar substratpolyubiquitination, och E3s med Ring-domänen kräver E2~ub för att överföra polyubiquitination53,54. Det dimer Ub-bindande enzymet Ubc13/Uev1A har bekräftats vara involverat i aggregationen av TRAF6 polyubiquitination16. Medan K124 från mus TRAF6 slås ut kommer TRAF6 att förlora aktiviteten av K63 auto-ubiquitination, och mutationen på denna plats eliminerar ubiquitination av TRAF6-medierad NEMO och aktiveringen av TAK1, IKK och NF-KB55 . Det är exakt eftersom PRDX1 binder till TRAF6 Ring Finger-domänen som finns i K124 och eliminerar ubiquitinering av TRAF638. Det har rapporterats att ubiquitinering av TRAF6 är nära relaterad till dimeriseringen av dess N-terminala domän (ringfinger- och ZF-fingerdomän). Flera N-terminala interaktionsställen med Ubc13 muterades och Ubc13 kunde inte överföra poly~ub till TRAF616. Interaktionen mellan calpain2a och TRAF6 mutanter visade att de flesta av domänerna av TRAF6 interagerade med calpain2a, förutom ringfingerdomänen. På grund av interaktionen mellan calpain2a och ZF-fingrarnas domän av TRAF6, spekulerade vi att calpain2a kan hämma auto-ubiquitination genom att blockera dimeriseringen av TRAF6. Därefter verifierade vi interaktionen mellan olika taggar av TRAF6. När uttrycket av mutant calpain2a som saknar hydrolasaktivitet ökade, försvagades interaktionen mellan olika taggar av TRAF6. HA-märkt TRAF6 främjar ubiquitination av Myc-märkt TRAF6, och mutant calpain2a hämmar ubiquitination förstärkt av HA-märkt TRAF6. Som en intermediär i processen för TRAF6-TAK1-signalöverföring, binder ECSIT till den C-terminala domänen av TRAF6 (CC-domän och TRAF-C-domän) och bekräftas vara involverad i NF-KB-signalering37. Uttrycket av proinflammatoriska cytokiner minskade i ECSITKD THP-1-celler. Men efter överuttryck av ECSIT i ECSITKD THP-1-celler ökade gener som IRF7, IL-1 och CD44 signifikant37. PRDX1 binder till ringfingerdomänen av TRAF6 och hämmar ubiquitination av ECSIT och BECN1 i NF-KB och autofagi-signaler genom att hämma bildandet av TRAF6 polyubiquitination38. Hos teleostfisk bekräftade vi den ECSIT-aktiverade NF-KB-signalvägen, interagerade med TRAF6 respektive TAK1 och överförde polyubiquitinkedjan producerad av TRAF6. calpain2a band till ZF-domänen, CC-domänen och TRAF-C-domänen i TRAF6, vilket hämmade interaktionen mellan TRAF6-ECSIT. Vi bekräftade att mutant calpain2a som saknar hydrolasaktivitet förhindrade polyubiquitinkedjan från TRAF6 till ECSIT och BECN1.

Fig. 6 calpain2a dämpar autoubiquitination av TRAF6. en HEK293-celler transfekterades med TRAF6-Myc, TRAF6-HA eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och IP analyserades med HA-antikropp. b HEK293-celler transfekterades med TRAF6-Myc, TRAF6-HA, tom vektor eller calpain2a-flagga. Efter 24 timmar efter transfektion lyserades cellerna och IP analyserades med HA-antikropp. c HEK293-celler transfekterades med TRAF6-Myc, TRAF6-HA, tom vektor eller olika koncentrationer av calpain2a-ΔCysPc-Flag. Efter 24 timmar efter transfektion lyserades cellerna och IP analyserades med HA-antikropp. d, e HEK293-celler samtransfekterades med TRAF6-Myc, TRAF6-HA och WT-ubiquitin-His eller K63O-ubiquitin-His (där endast lysin 63 hålls) tillsammans med calpain2a-Flag , calpain2a-ΔCysPc-Flagga eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. Immunoutfällningen och inmatad immunoblotanalys med anti-Myc, anti-Flag, anti-HA och anti-Tubulin Abs. Alla experiment utfördes i minst tre oberoende experiment.
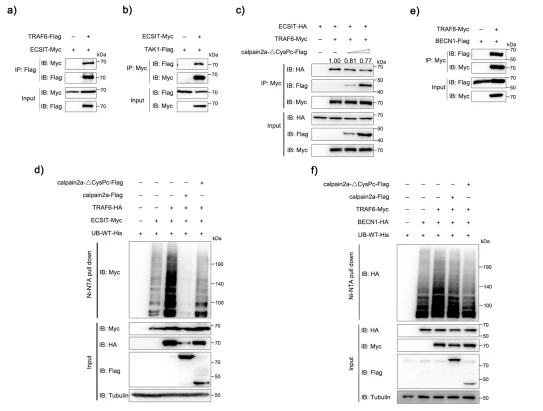
Fig. 7 calpain2a hämmar TRAF6-förmedlad ubiquitination av ECSIT och BECN1. en HEK293-celler transfekterades med ECSIT-Myc, TRAF6-flagga eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och IP analyserades med flaggantikropp. b HEK293-celler transfekterades med TAK1-flagga, ECSIT-Myc eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och IP-analyserades med Myc-antikropp. c HEK293-celler transfekterades med TRAF6-Myc, ECSIT-HA, tom vektor eller olika koncentrationer av calpain2a-ΔCysPc-Flag. Efter 24 timmar efter transfektion lyserades cellerna och IP-analyserades med Myc-antikropp. d HEK293-celler samtransfekterades med ECSIT-Myc, TRAF6-HA, WT-ubiquitin-His tillsammans med calpain2a-Flag, calpain2a-ΔCysPc-Flag eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. e HEK293-celler transfekterades med BECN1-Flagga, TRAF6-Myc eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och IP-analyserades med Myc-antikropp. f HEK293-celler samtransfekterades med BECN1-HA, TRAF6-Myc, WT-ubiquitin-His tillsammans med calpain2a-Flag, calpain2a-ΔCysPc-Flag eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. Immunoutfällningen och inmatning med anti-Myc, anti-Flagga, anti-HA och anti-Tubulin Abs. Alla experiment utfördes i minst tre oberoende experiment.
Vi märker att calpain2a har hydrolasaktivitet som en av den kalciumberoende proteasfamiljen. m-calpain (calpain-2) spelar en positiv reglerande roll i NF-KB-signalvägen för HepG2-leverceller. Oberoende av 26 s proteasommetoden hydrolyserar calpain2a IkB för att frigöra transkriptionsfaktorn NF-KB. Den specifika hämmaren av kalpainprotein förhindrar nedbrytningen av IkB 56. För kalpain finns det dock få studier på fiskens medfödda immunsvar. I MKC-celler hämmade överuttryck av calpain2a NF-KB nedströms proinflammatoriska cytokiner inducerade av LPS. Detta fenomen stod i strid med resultaten i HepG2-leverceller. Det kan vara så att artspecificiteten hos calpainproteinfamiljen orsakade olika effekter. På liknande sätt använde vi den specifika hämmaren av calpainproteinet E-64 för att förhindra calpain2a från att hydrolysera TRAF6. Mutant calpain2a som saknar hydrolasaktivitet hämmar TRAF6 ubiquitinligasaktivitet utan att påverka dess proteinnivåer. Vi hittade inga enzymaktiva platser för calpain2a. Enligt tidigare studier på däggdjur är de tre platserna: cystein (C105A), histidin (H262A) och asparaginrester (N286A). Våra experiment bekräftar dock att de tre aktiva platserna för miiuy croaker calpain2a inte påverkar uttrycket av TRAF6-proteinnivåer, men mutant calpain2a som saknar hydrolasdomän gör det. Därför valde vi att mutera hela den enzymaktiverande strukturella domänen. Även om protein calpain2a är relativt konserverat i däggdjur och lägre ryggradsdjur, förtjänar de specifika enzymatiska aktivitetsställena ytterligare undersökning.

cistanche växthöjande immunförsvar
Sammanfattningsvis identifierade vi calpain2a som en negativ regulator av LPS-inducerad NF-KB-signalering och virusinducerad IFN-aktivering (Fig. 9e). I masspektrometri kan calpain2a interagera med TRAF6 och vi demonstrerade detta fenomen genom endogent coimmunoprecipitationsexperiment. Vi fann att calpain2a är involverad i regleringen av den LPS-inducerade NF-KB-signalvägen. Dessutom spelar TRAF6 också en viktig roll i antivirala signalvägar. Vi använde SCRV och Ploy (I: C) för att stimulera IFN-signalvägen och fann att calpain2a också kan hämma IFN-signalering genom att reglera proteinnivån och autoubiquitination av TRAF6. Eftersom TLR3 kan känna igen den dubbelsträngade RNA-strukturen (dsRNA) som produceras av virusinfektioner. Vi är mer intresserade av att belysa calpain2a-reglering av TRAF6-förmedlad IFN-signalväg men utesluter inte ett potentiellt samband mellan calpain2a och TLR3-signalvägen. calpain2a främjade nedbrytningen av TRAF6 på ett hydrolytiskt sätt och interagerade med TRAF6 för att hämma bildningen av dimerer och auto-ubiquitination. Denna hämning förhindrade interaktionen mellan TRAF6 och ECSIT och ubiquitineringsprocessen från TRAF6 till ECSIT, BECN1, IRF3 och IRF7. Våra nuvarande resultat kommer att bidra till förståelsen av de negativa regleringsmekanismerna genom att rikta in sig på TRAF6 i medfödda immunsvar. Dessutom indikerar denna forskning nyckelrollen för TRAF6-homoligomerisering och auto-ubiquitinering i processen för fiskens medfödda immunsvar. Samtidigt föreslås calpain2a som ett protein för reglerande mekanismer för att hämma immunsvaret hos TRAF6 och förhindra de normala och ordnade signalvägarna. Insikterna är användbara för att förstå ryggradsdjurens immunologi och utvecklingen av ryggradsdjurens immunsystem.
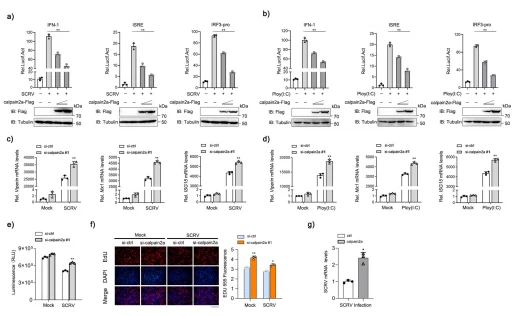
Fig. 8 calpain2a hämmar SCRV- eller Poly(I:C)-inducerad IFN-aktivering. ab EPC-celler transfekterades med olika koncentrationer av calpain2a-Flag eller tom vektor tillsammans med IFN-1, ISRE och IRF3-pro luciferasreporter. Vid 24 timmar efter transfektion var celler skeninfekterade eller infekterade med SCRV eller Poly(I:C) i 12 timmar (n=3 per grupp). Western blot-analys användes för att mäta uttrycket av transient transfekterad calpain2a-Flag. Uttrycket av Tubulin användes som en laddningskontroll. c, d Viperin, Mx1, ISG15 mRNA i MKC stabilt transducerad med si-calpain2a #1 eller si-ctrl (kontrollvektor) och behandlad med saltlösning (0) eller utmanad med SCRV eller Poly(I:C) för 24 h. Relativ mRNA-nivå normaliserades till uttrycket av genen som kodar -aktin i varje prov (n=3 per grupp). e, f MKC-celler transfekterades med antingen si-ctrl eller si-calpain2a #1. 24 timmar efter transfektion stimulerades cellerna med SCRV i 24 timmar, sedan mättes cellviabilitetsanalys och cellproliferationsanalys (n=3 per grupp). Skalstapel, 100 μm. g MKC-celler transfekterades med calpain2a-Flag eller pcDNA3.1, infekterades sedan med SCRV i 24 timmar (n=3 per grupp). QRT-PCR-analysen utfördes för intracellulärt och supernatant SCRV-RNA-uttryck. Alla experiment utfördes i minst tre oberoende experiment. Data analyserades med envägs ANOVA (a, b), tvåvägs ANOVA (c, d, e, f) eller tvåsidigt Students t-test (g). *p < 0,05, **p < 0,01.
Metoder
Cell kultur.
Human embryonala njure (HEK) 293 cellinjer och Epithelioma papulosum cyprini (EPC) cellinjer, köptes från American Type Culture Collection och förvarades i vårt labb. Miiuy croaker (M. miiuy) njurcellinjer (MKC) och Miiuy croaker intestine cellines (MIC) odlades från njure och tarmvävnader från miiuy croaker57,58. Miiuy croaker njurcellinjer och Miiuy croaker intestine cellinjer odlades vid 26 grader i en fuktad inkubator innehållande 0,5 % CO2 i L-15 medium (HyClone, USA) kompletterat med 15 % FBS (Gibco) , USA), 100 U/ml penicillin (Gibco, USA), 100 ug/ml streptomycin (Gibco, USA) och 20 U/ml heparin (Solarbio, Kina). Epithelioma papulosum cyprini-celler odlades vid 26 grader i en fuktad inkubator innehållande 5 % CO2 i medium 199 (Hyclone) kompletterat med 10 % FBS, 2 mM L-glutamin, 100 U/ml penicillin och 100 mg/ml streptomycin. Humana embryonala njure 293-celler odlades vid 37 grader i en fuktad inkubator innehållande 5 % CO2 i Dulbeccos modifierade Eagles medium (DMEM) (Invitrogen) kompletterat med 10 % FBS, 2 mM L-glutamin, 100 U/ml penicillin och 100 mg /ml streptomycin.

Fig. 9 calpain2a hämmar TRAF6-förmedlad ubiquitination av IRF7 och IRF3. b HEK293-celler samtransfekterades med IRF3-Myc, TRAF6-HA och WTubiquitin-His eller K63O-ubiquitin-His (där endast lysin 63 hålls) tillsammans med calpain2a-Flag, calpain2a-ΔCysPc -Flagga eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. c, d HEK293-celler samtransfekterades med IRF7-Myc, TRAF6-HA och WT-ubiquitinHis eller K63O-ubiquitin-His (där endast lysin 63 hålls) tillsammans med calpain2a-Flag, calpain2a -ΔCysPc-Flagga eller tom vektor. Efter 24 timmar efter transfektion lyserades cellerna och renades med Ni-NTA-agaros. Alla immunoutfällningar och inmatning med anti-Myc, anti-Flagga, anti-HA och anti Tubulin Abs. Alla experiment utfördes i minst tre oberoende experiment. e Modell som beskriver rollerna för calpain2a i TRAF6-förmedlade signalvägar. Vid LPS och virus kunde TRAF6 aktiveras, homo-oligomerisering och auto-ubiquitination. BECN1, ECSIT, IRF7 och IRF3 är ubiquitinerade av TRAF6 och utlöser aktiveringen av nedströmssignaler. calpain2a som en negativ regulator riktar in sig på TRAF6 för att hämma TRAF6-förmedlade signalvägar.
Referenser
1. Akira, S., Uematsu, S. & Takeuchi, O. Patogenigenkänning och medfödd immunitet. Cell 124, 783–801 (2006).
2. Takeuchi, O. & Akira, S. Mönsterigenkänningsreceptorer och inflammation. Cell 140, 805–820 (2010).
3. Wu, J. & Chen, ZJ Medfödd immunavkänning och signalering av cytosoliska nukleinsyror. Annu. Rev. Immunol. 32, 461–488 (2014).
4. Moresco, EM, LaVine, D. & Beutler, B. Toll-liknande receptorer. Curr. Biol. 21, R488–R493 (2011).
5. Schlee, M. Mastersensorer för patogent RNA - RIG-I-liknande receptorer. Immunobiology 218, 1322–1335 (2013).
6. Wilmanski, JM, Petnicki-Ocwieja, T. & Kobayashi, KS. NLR-proteiner: integrerade medlemmar av medfödd immunitet och mediatorer av inflammatoriska sjukdomar. J. Leukoc. Biol. 83, 13–30 (2008).
7. Akira, S. & Hemmi, H. Erkännande av patogenassocierade molekylära mönster av TLR-familjen. Immunol. Lett. 85, 85–95 (2003).
8. Kawai, T. & Akira, S. Rollen av mönsterigenkännande receptorer i medfödd immunitet: uppdatering om Toll-liknande receptorer. Nat. Immunol. 11, 373–384 (2010).
9. Kawagoe, T. et al. Sekventiell kontroll av Toll-liknande receptorberoende svar av IRAK1 och IRAK2. Nat. Immunol. 9, 684–691 (2008).
10. Suzuki, N. & Saito, T. IRAK-4–en delad NF-kappaB-aktivator i medfödd och förvärvad immunitet. Trender Immunol. 27, 566–572 (2006).
11. Kawai, T. & Akira, S. TLR-signalering. Celldöd skiljer sig åt. 13, 816–825 (2006).
12. Deng, L. et al. Aktivering av IkappaB-kinaskomplexet av TRAF6 kräver ett dimert ubiquitin-konjugerande enzymkomplex och en unik polyubiquitinkedja. Cell 103, 351-361 (2000).
13. Ninomiya-Tsuji, J. et al. Kinaset TAK1 kan aktivera NIK-I kappaB såväl som MAP-kinaskaskaden i IL-1-signalvägen. Nature 398, 252–256 (1999).
14. Takaesu, G. et al. TAB2, ett nytt adapterprotein, förmedlar aktivering av TAK1 MAPKKK genom att länka TAK1 till TRAF6 i IL-1-signaltransduktionsvägen. Mol. Cell. 5, 649–658 (2000).
15. Qian, Y., Commane, M., Ninomiya-Tsuji, J., Matsumoto, K. & Li, X. IRAKm-medierad translokation av TRAF6 och TAB2 i interleukin-1-inducerad aktivering av NF-kappa BJ Biol. Chem. 276, 41661–41667 (2001).
16. Yin, Q. et al. E2-interaktion och dimerisering i kristallstrukturen hos TRAF6. Nat. Struktur. Mol. Biol. 16, 658–666 (2009).
17. Wang, C. et al. TAK1 är ett ubiquitin-beroende kinas av MKK och IKK. Nature 412, 346–351 (2001).
18. Ajibade, AA, Wang, HY & Wang, RF-celltypspecifik funktion av TAK1 i medfödd immunsignalering. Trender Immunol. 34, 307–316 (2013).
19. Zhang, J., Clark, K., Lawrence, T., Peggie, MW & Cohen, P. En oväntad vändning till aktiveringen av IKKbeta: TAK1 primerar IKKbeta för aktivering genom autofosforylering. Biochem. J. 461, 531–537 (2014).
20. Emmerich, CH et al. Aktivering av det kanoniska IKK-komplexet av K63/M1- länkade hybridubikvitinkedjor. Proc. Natl Acad. Sci.110, 15247–15252 (2013).
21. Kawai, T. et al. Interferon-alfa-induktion genom Toll-liknande receptorer involverar en direkt interaktion av IRF7 med MyD88 och TRAF6. Nat. Immunol. 5, 1061–1068 (2004).
22. Kitagawa, Y. et al. Humant parainfluensavirus typ 2 V-protein hämmar TRAF6--medierad ubiquitination av IRF7 för att förhindra TLR7- och TLR9--beroende interferoninduktion. J. Virol. 87, 7966–7976 (2013).
23. Kawai, T. et al. IPS-1, en adapter som utlöser RIG-I- och Mda5-förmedlad typ I-interferoninduktion. Nat. Immunol. 6, 981–988 (2005).
24. Zust, R. et al. Ribos 2'-O-metylering ger en molekylär signatur för distinktionen av själv- och icke-själv-mRNA beroende på RNA-sensorn Mda5. Nat. Immunol. 12, 137–143 (2011).
25. Seth, RB, Sun, L., Ea, CK & Chen, ZJ Identifiering och karakterisering av MAVS, ett mitokondriellt antiviralt signalprotein som aktiverar NF kappaB och IRF 3. Cell 122, 669–682 (2005).
26. Xu, LG et al. VISA är ett adapterprotein som krävs för virusutlöst IFN beta-signalering. Mol. Cell. 19, 727–740 (2005).
27. Yoshida, R. et al. TRAF6 och MEKK1 spelar en central roll i den RIG-I-liknande helikas-antivirala vägen. J. Biol. Chem. 283, 36211–36220 (2008).
28. Liu, S. et al. MAVS rekryterar flera ubiquitin E3-ligaser för att aktivera antivirala signalkaskader. Elife 2, e00785 (2013).
29. Ivashkiv, LB & Donlin, LT Reglering av typ I-interferonsvar. Nat. Rev. Immunol. 14, 36–49 (2014).
30. Fu, TM, Shen, C., Li, Q., Zhang, P. & Wu, H. Mekanism för ubiquitinöverföring främjas av TRAF6. Proc. Natl Acad. Sci. 115, 1783–1788 (2018).
31. Boone, DL et al. Det ubiquitin-modifierande enzymet A20 krävs för att avsluta Toll-liknande receptorsvar. Nat. Immunol. 5, 1052–1060 (2004).
32. Kovalenko, A. et al. Tumörsuppressorn CYLD reglerar negativt NF kappaB-signalering genom deubiquitination. Nature 424, 801–805 (2003).
33. He, X. et al. USP2a reglerar negativt IL-1beta- och virusinducerad NF kappaB-aktivering genom att deubiquitinera TRAF6. J. Mol. Cell Biol. 5, 39–47 (2013).
34. Xiao, N. et al. Ubiquitin-specifikt proteas 4 (USP4) riktar sig till TRAF2 och TRAF6 för deubiquitination och hämmar TNFalfa-inducerad cancercellmigrering. Biochem. J. 441, 979–986 (2012).
35. Yasunaga, J., Lin, FC, Lu, X. & Jeang, KT Ubiquitin-specifikt peptidas 20 är inriktat på TRAF6 och human T-cellsleukemivirus typ 1-skatt för att negativt reglera NF-kappaB-signalering. J. Virol. 85, 6212–6219 (2011).
36. Zhang, X., Zhang, J., Zhang, L., van Dam, H. & ten Dijke, P. UBE2O reglerar TRAF6-förmedlad NF-kappaB-aktivering negativt genom att hämma TRAF6-polyubiquitination. Cell Res. 23, 366–377 (2013).
37. Wi, SM et al. TAK1-ECSIT-TRAF6-komplexet spelar en nyckelroll i TLR4-signalen för att aktivera NF-kappaB. J. Biol. Chem. 289, 35205–35214 (2014).
38. Min, Y., Kim, MJ, Lee, S., Chun, E. & Lee, KY Hämning av TRAF6 ubiquitin-ligasaktivitet av PRDX1 leder till hämning av NFKB-aktivering och autofagiaktivering. Autophagy 14, 1347–1358 (2018).
39. Jiao, S. et al. Kinaset MST4 begränsar inflammatoriska svar genom direkt fosforylering av adaptern TRAF6. Nat. Immunol. 16, 246–257 (2015).
40. Baudry, M. & Bi, X. Calpain-1 och Calpain-2: Yin och Yang av synaptisk plasticitet och neurodegeneration. Trender Neurosci. 39, 235–245 (2016).
41. Franco, SJ & Huttenlocher, A. Reglera cellmigration: calpains gör snittet. J. Cell Sci. 118, 3829–3838 (2005).
42. Katsube, M. et al. Calpain-medierad reglering av de distinkta signalvägarna och cellmigration i mänskliga neutrofiler. J. Leukoc. Biol. 84, 255–263 (2008).
43. Schaecher, K., Goust, JM & Banik, NL Effekterna av calpain-hämning på IkB-alfa-nedbrytning efter aktivering av PBMC: identifiering av calpain-klyvningsställena. Neurochem. Res. 29, 1443–1451 (2004).
44. Tompa, P. et al. På de sekventiella bestämningsfaktorerna för kalpainklyvning. J. Biol. Chem. 279, 20775–20785 (2004).
45. Cuerrier, D., Moldoveanu, T. & Davies, PL Bestämning av peptidsubstratspecificitet för mu-calpain genom ett peptidbiblioteksbaserat tillvägagångssätt: vikten av förberedda sidointeraktioner. J. Biol. Chem. 280, 40632–40641 (2005).
46. DuVerle, DA, Ono, Y., Sorimachi, H. & Mamitsuka, H. Calpain-klyvningsförutsägelse med hjälp av multipelkärninlärning. PLoS One. 6, e19035 (2011).
47. Shi, CS & Kehrl, JH TRAF6 och A20 reglerar lysin 63-länkad ubiquitination av Beclin-1 för att kontrollera TLR4-inducerad autofagi. Sci. Signal. 3, ra42 (2010).
48. Loo, YM & Gale, M. Immunsignalering av RIG-I-liknande receptorer. Immunity 34, 680–692 (2011).
49. Ling, T. et al. TARBP2 hämmar IRF7-aktivering genom att undertrycka TRAF6-förmedlad K63-länkad ubiquitination av IRF7. Mol. Immunol. 109, 116–125 (2019).
50. Zhou, Z. et al. Zebrafisk otud6b reglerar negativt antivirala svar genom att undertrycka K63-länkad ubiquitination av irf3 och irf7. J. Immunol. 207, 244–256 (2021).
51. Kobayashi, T., Walsh, MC & Choi, Y. Rollen av TRAF6 i signaltransduktion och immunsvar. Mikrober infekterar. 6, 1333–1338 (2004).
52. Wu, H. & Arron, JR TRAF6, en molekylär brygga som spänner över adaptiv immunitet, medfödd immunitet och osteoimmunologi. Bioessays 25, 1096–1105 (2003).
53. Pickart, CM & Eddins, MJ Ubiquitin: strukturer, funktioner, mekanismer. Biochim. Biophys. Acta. 1695, 55–72 (2004).
54. Pickart, CM & Fushman, D. Polyubiquitin-kedjor: polymera proteinsignaler. Curr. Opin. Chem. Biol. 8, 610–616 (2004).
55. Lamothe, B. et al. Platsspecifik Lys-63-länkad tumörnekrosfaktorreceptorassocierad faktor 6 auto-ubiquitination är en kritisk determinant för I kappa B-kinasaktivering. J. Biol. Chem. 282, 4102–4112 (2007).
56. Han, Y., Weinman, S., Boldogh, I., Walker, RK & Brasier, AR Tumörnekrosfaktor-alfa-inducerbar IkappaBalpha-proteolys medierad av cytosolisk m-kalpain. En mekanism parallell med ubiquitin-proteasomvägen för nukleär faktor-kappa B-aktivering. J. Biol. Chem. 274, 787-794 (1999).
57. Chu, Q. et al. Ett mycket konserverat cirkulärt RNA circRasGEF1B förstärker den antivirala immuniteten genom att reglera miR-21-3p/MITA-vägen hos lägre ryggradsdjur. J. Virol. 95, e02145–20 (2021).
58. Chen, Y., Cao, B., Zheng, W. & Xu, T. ACKR4a inducerar autofagi för att blockera NF-kappaB-signalering och apoptos för att underlätta Vibrio harveyi-infektion. iScience 26, 106105 (2023).
59. Sepulcre, MP et al. Evolution av lipopolysackarid (LPS) igenkänning och signalering: fisk TLR4 känner inte igen LPS och reglerar negativt NF kappaB-aktivering. J. Immunol. 182, 1836–1845 (2009).
60. Zheng, W., Chu, Q. & Xu, T. Det långa icke-kodande RNA NARL reglerar immunsvar via mikroRNA-medierad NOD1-nedreglering i teleostfisk. J. Biol. Chem. 296, 100414 (2021).
61. Zheng, W., Su, H., Lv, X., Xin, S. & Xu, T. Exon-Intron Circular RNA circRNF217 främjar medfödd immunitet och antibakteriell aktivitet hos teleostfisk genom att minska miR-130-3p Fungera. J. Immunol. 208, 1099–1114 (2022).
62. Xu, T., Chu, Q. & Cui, J. Rhabdovirus-inducerbart mikroRNA-210 modulerar antiviralt medfödd immunsvar genom att rikta STING/MITA i fisk. J. Immunol. 201, 982–994 (2018).
63. Bi, D. et al. Igenkänning av Lipopolysackaride och aktivering av NF-kappaB av Cytosolic Sensor NOD1 i Teleost Fish. Främre. Immunol. 9, 1413 (2018).
64. Yan, X., Zhao, X., Huo, R. & Xu, T. IRF3 och IRF8 Reglerar NF-kappaB-signalering genom att rikta in sig på MyD88 i Teleost Fish. Främre. Immunol. 11, 606 (2020).
65. Chen, Y., Cao, B., Zheng, W., Sun, Y. & Xu, T. eIF3k hämmar NF-kappaB-signalering genom att rikta in sig på MyD88 för ATG5-medierad autofagisk nedbrytning i teleostfisk. J. Biol. Chem. 298, 101730 (2022).